عسل Manuka العلاجي: لم يعد بديلاً غريبًا
يشهد البحث في العسل الطبي نهضة ملحوظة. فبعد أن كان يُنظر إليه بوصفه علاجًا شعبيًا ترفضه إلى حد كبير الأوساط الطبية السائدة باعتباره «بديلًا»، نرى الآن اهتمامًا متزايدًا من العلماء والممارسين السريريين وعامة الناس بالاستخدامات العلاجية للعسل. وهناك عدد من العوامل التي تدفع هذا الاهتمام: أولًا، أدى تزايد مقاومة العديد من مسببات الأمراض البكتيرية للمضادات الحيوية إلى تحفيز الاهتمام بتطوير مضادات بكتيرية جديدة واستخدامها؛ وثانيًا، أظهر عدد متزايد من الدراسات الموثوقة وتقارير الحالات أن أنواعًا معينة من العسل فعالة جدًا في علاج الجروح؛ وثالثًا، يُباع العسل العلاجي بسعر مرتفع، وتعمل صناعة العسل بنشاط على الترويج للدراسات التي ستتيح لها الاستفادة من ذلك؛ وأخيرًا، توفر طبيعة العسل شديدة التعقيد وغير القابلة للتنبؤ إلى حد ما تحديًا جذابًا لعلماء المختبرات. نستعرض في هذه الورقة أبحاث عسل Manuka، بدءًا من الدراسات الرصدية حول تأثيراته المضادة للميكروبات وصولًا إلى الأعمال التجريبية والآلية الحالية التي تهدف إلى إدخال العسل في صميم الطب السائد. ونوضح الثغرات الحالية والجدل المتبقي في معرفتنا بكيفية تأثير العسل، ونقترح دراسات جديدة قد تجعل البديل «البديل» للعسل غير بديل بعد الآن.
مقدمة
استُخدم العسل دواءً طوال تاريخ البشرية. وكان أحد أكثر الاستخدامات العلاجية شيوعًا واستمرارية للعسل هو استخدامه ضمادًا للجروح، ويُعزى ذلك بالتأكيد تقريبًا إلى خصائصه المضادة للميكروبات. ومع ظهور المضادات الحيوية شديدة الفعالية في ستينيات القرن العشرين، رُفض العسل باعتباره «مادة عديمة القيمة لكنها غير ضارة» (Soffer, 1976). إلا أن الأزمة الحالية والمتفاقمة لمقاومة المضادات الحيوية أعادت إحياء الاهتمام باستخدام العسل، سواء بوصفه عاملًا فعالًا بحد ذاته أو بوصفه أساسًا علاجيًا لتطوير أساليب علاج جديدة. يُستخلص العسل عادةً من رحيق الأزهار وتنتجه النحل، وأكثرها شيوعًا نحلة العسل الأوروبية Apis mellifera، وهو مزيج معقد من السكريات والأحماض الأمينية والمركبات الفينولية ومواد أخرى. وتختلف أنواع العسل المستخلصة من نباتات مزهرة مختلفة اختلافًا كبيرًا في قدرتها على قتل البكتيريا، وقد أدى ذلك إلى تعقيد الأدبيات المتعلقة بالعسل، وجعل أحيانًا إعادة إنتاج النتائج عبر الدراسات المختلفة أمرًا صعبًا (Allen et al., 1991؛ Irish et al., 2011). ركزت غالبية الدراسات الحديثة التي تبحث في آلية عمل العسل على عسل Manuka النشط، الموصوف جيدًا والموحّد المعايير، والذي تنتجه أنواع معينة من Leptospermum المحلية في نيوزيلندا وأستراليا، وقد سُجّل بوصفه منتجًا للعناية بالجروح لدى الجهات التنظيمية الطبية المختصة. ولذلك، ما لم يُذكر خلاف ذلك، ستركز هذه المراجعة على عسل Manuka.
التحليلات الكيميائية لعسل Manuka النشط
كان البروفيسور بيتر مولان من جامعة وايكاتو في نيوزيلندا أول من أبلغ عن النشاط غير المعتاد لعسل Manuka، وبدأ في منتصف ثمانينيات القرن العشرين اختبار تأثيره على مجموعة واسعة من الأنواع البكتيرية المختلفة. ومع ذلك، وبينما كان واضحًا أن حتى التراكيز المنخفضة من عسل Manuka تقتل مسببات الأمراض البكتيرية، ظل المكوّن النشط المحدد المسؤول عن ذلك مجهولًا لسنوات عديدة. تجعل نسبة السكر المرتفعة ودرجة الحموضة المنخفضة العسلَ مثبطًا لنمو الميكروبات، لكن النشاط يستمر عند تخفيف هذين العاملين إلى مستويات ضئيلة لا يُعتد بها. كما تنتج أنواع كثيرة من العسل بيروكسيد الهيدروجين عندما يتفاعل إنزيم أكسيداز الغلوكوز، المشتق من نحل العسل، مع الغلوكوز والماء. أما في عسل Manuka، فإن إنتاج بيروكسيد الهيدروجين منخفض نسبيًا ويمكن تحييده بواسطة الكاتالاز، ومع ذلك يظل النشاط قائمًا. وقد كُشف أخيرًا في عام 2008 عن سبب هذا النشاط المتبقي، الذي أُطلق عليه اسم «النشاط غير البيروكسيدي» أو NPA، عندما حدّد مختبران بصورة مستقلة وجود ميثيل غليوكسال (MGO) في عسل Manuka (Adams et al., 2008؛ Mavric et al., 2008). وينتج MGO عن نزع الماء تلقائيًا من سَلَفه ثنائي هيدروكسي الأسيتون (DHA)، وهو مركّب نباتي كيميائي طبيعي يوجد في رحيق أزهار Leptospermum scoparium, Leptospermum polygalifolium وبعض أنواع Leptospermum ذات الصلة، وهي أنواع موطنة لنيوزيلندا وأستراليا (Adams et al., 2009؛ Williams et al., 2014؛ Norton et al., 2015). ويمكن لـ MGO أن يتفاعل بدرجة غير نوعية نسبيًا مع الجزيئات الكبيرة مثل DNA وRNA والبروتينات (Adams et al., 2008؛ Mavric et al., 2008؛ Majtan et al., 2014b)، وقد يكون سامًا نظريًا للخلايا الثديية (Kalapos, 2008). ومع ذلك، لا توجد أدلة على حدوث ضرر للخلايا المضيفة عند تناول عسل Manuka عن طريق الفم أو استخدامه كضماد للجروح؛ بل يبدو أن العسل يحفّز الالتئام ويقلل الندبات عند وضعه على الجروح (Biglari et al., 2013؛ Majtan, 2014؛ Dart et al., 2015). ولا يُعرف كيف يُحدث هذه السمية الانتقائية الظاهرية للخلايا البكتيرية.
عادةً ما تنتج المستويات المرتفعة من MGO أو بيروكسيد الهيدروجين عسلًا ذا نشاط أكبر، إلا أن الارتباط ليس مثاليًا دائمًا، مما يشير إلى أن مكونات أخرى في العسل قد تعدّل النشاط (Molan, 2008؛ Kwakman et al., 2011؛ Chen et al., 2012؛ Lu et al., 2013). ديفنسين-1 النحلي، وهو ببتيد مضاد للميكروبات مشتق من النحل، مسؤول عن النشاط في عسل Revamil، وهو عسل نشط يُنتَج من مصدر غير مُعلَن، لكن يبدو أن هذا الببتيد يتعرض لتعديل بنيوي ويصبح غير نشط في عسل Manuka (Kwakman et al., 2011؛ Majtan et al., 2012). ويرتبط مستوى الليبتوسين، وهو غليكوسيد يوجد حصريًا في عسل Leptospermum، بالقوة، وقد يعدّل النشاط المضاد للميكروبات في عسل Manuka (Kato et al., 2012). وبالمثل، قد توجد مركبات فينولية مختلفة ذات نشاط محتمل مضاد للميكروبات، ولا سيما في أنواع العسل الأغمق لونًا. وعلى الرغم من وجودها بمستويات يُرجّح ألا تكون مثبطة بمفردها، فقد تتآزر مع بعضها أو مع مكونات أخرى في العسل لإنتاج النشاط أو تعديله (Estevinho et al., 2008؛ Stephens et al., 2010). ويمكن للفينولات أيضًا أن تعمل كمضادات أكسدة، وقد تكون مسؤولة عن خصائص العسل المضادة للالتهاب والمساعدة على التئام الجروح (Stephens et al., 2010). وتجدر الإشارة إلى أن ليست كل أنواع Leptospermum تنتج عسلًا نشطًا، وحتى داخل عسل L. scoparium وL. polygalifolium، يمكن أن تتراوح مستويات MGO من ∼100 إلى >1200 جزء في المليون (Windsor et al., 2012). وقد أظهر مسح لنشاط العسل الأسترالي أن العسل المستخلص من نباتات Leptospermum النامية حول الحدود بين نيو ساوث ويلز وكوينزلاند كان نشطًا بوجه خاص، لكن لا يُعرف ما إذا كان ذلك يرجع إلى عوامل نباتية أو التربة أو المناخ أو عوامل أخرى (Irish et al., 2011).
تثبيط مسببات الأمراض بالعسل
اختُبر العسل في المختبر على مجموعة متنوعة من مسببات الأمراض، ولا سيما تلك التي يمكن أن تستعمر الجلد والجروح والأغشية المخاطية، حيث يكون العلاج الموضعي بالعسل ممكنًا. وحتى الآن، أظهرت الاختبارات في المختبر أن عسل Manuka يمكنه تثبيط جميع مسببات الأمراض البكتيرية الإشكالية التي خضعت للاختبار بفعالية (وهو ما لُخّص في الجدول 1). ومن الأمور اللافتة للاهتمام أن العزلات السريرية ذات الأنماط الظاهرية للمقاومة المتعددة للأدوية (MDR) لم تُظهر انخفاضًا في حساسيتها للعسل، مما يشير إلى طيف واسع من التأثير يختلف عن أي مضاد للميكروبات معروف (Willix et al., 1992؛ Blair and Carter, 2005؛ George and Cutting, 2007؛ Tan et al., 2009). بالإضافة إلى ذلك، لم تنجح محاولات إنتاج سلالات مقاومة للعسل في المختبر، ولم تُسجَّل أي تقارير عن عزلات سريرية اكتسبت مقاومة للعسل (Blair et al., 2009؛ Cooper et al., 2010).
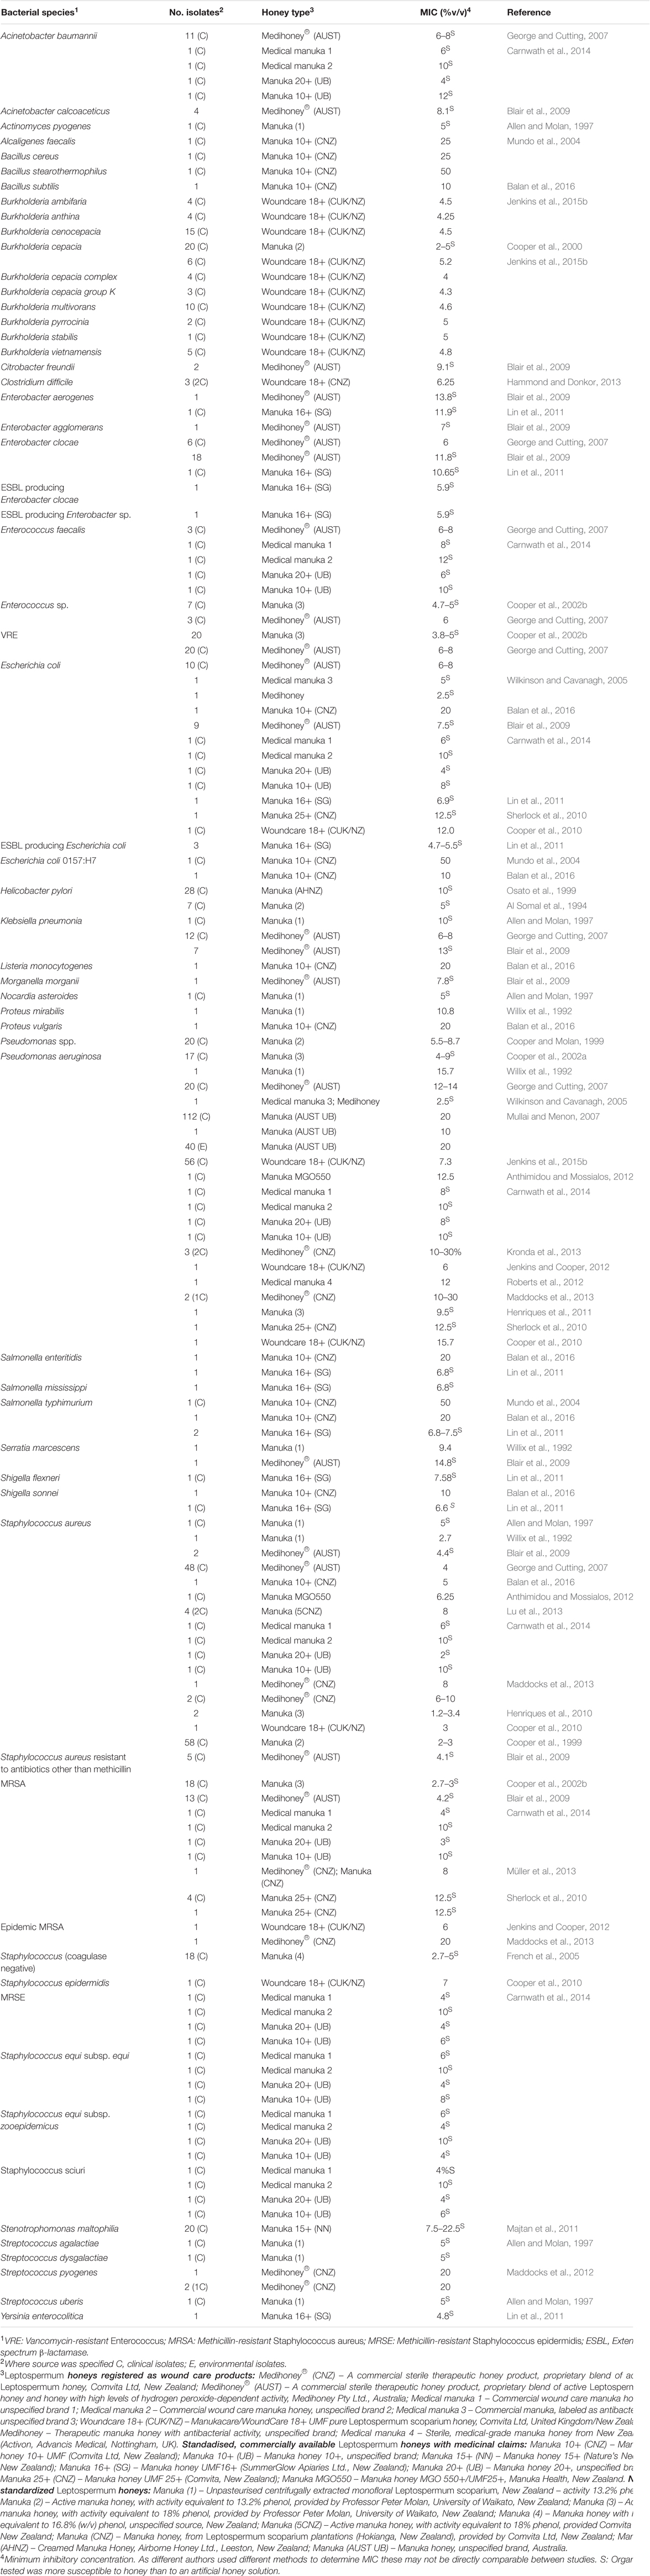
الجدول 1. أنواع البكتيريا التي ثبتت حساسيتها لعسل Manuka العلاجي.
بالإضافة إلى تثبيط الخلايا العالقة، يمكن للعسل تفكيك البكتيريا التي تعيش في الأغشية الحيوية وقتلها. الأغشية الحيوية هي مجتمعات من الخلايا تكون عادةً محاطة بمصفوفة خارج خلوية تنتجها ذاتيًا، وتوجد ملتصقة بالأسطح، بما في ذلك الجروح والأسنان والأسطح المخاطية والأجهزة المزروعة. تكون الميكروبات الموجودة في الأغشية الحيوية محمية من العوامل المضادة للميكروبات، ويمكن أن تسبب عدوى مستمرة لا تزول. يعطل عسل Manuka تجمعات الخلايا (Maddocks et al., 2012؛ Roberts et al., 2012) ويمنع تكوّن الأغشية الحيوية لدى مجموعة واسعة من مسببات الأمراض التي تسبب مشكلات، بما في ذلك أنواع Streptococcus وStaphylococcus، وPseudomonas aeruginosa, Escherichia coli, Proteus mirabilis, Enterobacter cloacae, Acinetobacter baumannii، وKlebsiella pneumonia(Maddocks et al., 2012، 2013؛ Lu et al., 2014؛ Majtan et al., 2014a؛ Halstead et al., 2016). والأهم من ذلك أن العسل يمكنه أيضًا تفكيك الأغشية الحيوية المتكوّنة بالفعل وقتل الخلايا الموجودة فيها، مع الحاجة إلى تركيز أعلى مما هو مطلوب للخلايا العالقة (Okhiria et al., 2009؛ Maddocks et al., 2013؛ Lu et al., 2014؛ Majtan et al., 2014a). وفي الآونة الأخيرة جدًا، اختُبر عسل Manuka على غشاء حيوي متعدد الأنواع يحتوي على Staphylococcus aureus, Streptococcus agalactiae, Pseudomonas aeruginosa، وEnterococcus faecalis، وتبيّن أنه خفّض حيوية جميع الأنواع باستثناء E. faecalis، الذي تعذّر القضاء عليه (Sojka et al., 2016). ولهذا آثار سريرية واضحة على استخدام العسل في الجروح التي تحتوي على أغشية حيوية، كما أن فهم كيفية تمكين الغشاء الحيوي لـ E. faecalis من البقاء عندما يُقتل عادةً بالعسل يمثل مجالًا مهمًا ومثيرًا للاهتمام للدراسات المستقبلية. يبدو أن MGO مسؤول إلى حد كبير، ولكن ليس بالكامل، عن تثبيط الأغشية الحيوية بواسطة عسل Manuka، مما يسلط الضوء مجددًا على أهمية المكونات الإضافية التي تعدّل النشاط (Kilty et al., 2011؛ Lu et al., 2014).
لم يُحدَّد بعد على نحو جيد نطاق فعالية العسل ضد مسببات الأمراض غير البكتيرية. وقد أشارت دراسات حديثة تبحث في التأثير المضاد للفيروسات لعسل Manuka إلى أن لديه إمكانات لعلاج فيروس الحماق النطاقي (المسبب لجدري الماء والحزام الناري) (Shahzad and Cohrs, 2012) والإنفلونزا (Watanabe et al., 2014). وتكون مسببات الأمراض الفطرية التي تصيب الجلد، بما في ذلك Candida albicans وأنواع الفطريات الجلدية، أقل حساسية بكثير من البكتيريا لعسل Manuka، لكنها تُثبَّط بالعسل ذي المستويات المرتفعة من إنتاج بيروكسيد الهيدروجين (Brady et al., 1996؛ Irish et al., 2006). وقد تبيّن أن عسل Manuka والعسل غير المصنوع من Manuka يقللان من حيوية أبواغ الميكروسبوريديا Nosema apis، وهي من مسببات الأمراض المهمة لدى النحل، لكن العسل لم يتمكن من علاج عدوى النحل بعد بدئها (Malone et al., 2001). وقد أُجريت دراسات قليلة جدًا حول استخدام العسل ضد الطفيليات الأوالي أو الديدان الطفيلية، ولم تستخدم هذه الدراسات عسلًا ذا فعالية موصوفة جيدًا، مما يصعّب تقييم أهمية نتائجها (Bassam et al., 1997؛ Nilforoushzadeh et al., 2007؛ Sajid and Azim, 2012).
إدخال العسل إلى الطب السائد: تسلّط الدراسات التجريبية والآلية الحديثة الضوء على كيفية عمل العسل
يتوفر عسل Manuka النشط على نطاق واسع بوصفه عاملًا علاجيًا وغذاءً وظيفيًا، ويتقبله معظم المستهلكين باعتباره منتجًا شاملًا يكتنفه بعض الغموض. غير أن نقص الفهم لكيفية قتل العسل للبكتيريا وتعزيزه للالتئام يحد من تقبّله في الطب السائد، حيث لا يزال يُعد «بديلًا» أو «تكميليًا». وقد كانت الغالبية العظمى من الدراسات البحثية حول العسل حتى الآن وصفية، إلا أن الدراسات الحديثة تحاول كشف آلية عمل العسل، وتستخدم مناهج آلية لتحديد كيفية تأثيره على المستويين الخلوي والجزيئي.
دراسات البنية فائقة الدقة للخلايا والمجتمعات البكتيرية المعالجة بالعسل
يمكن للعسل أن يغيّر حجم الخلايا البكتيرية وشكلها تغييرًا عميقًا، مع تفاوت مدى هذا التأثير بين الأنواع البكتيرية المختلفة. وباستخدام المجهر الإلكتروني النافذ (TEM)، احتوت مزارع S. aureus المعالجة بعسل Manuka على عدد أكبر من الخلايا ذات الحواجز المكتملة مقارنةً بتلك المعالجة بالعسل الاصطناعي، ما يشير إلى أن الخلايا دخلت مرحلة الانقسام لكنها لم تتمكن من إكمالها ضمن دورة الخلية، رغم أن هذه الخلايا بدت طبيعية ظاهريًا عند فحصها بالمجهر الإلكتروني الماسح (SEM) (Henriques et al., 2010). وفي الآونة الأخيرة، أظهر التصوير بالتباين الطوري عقب المعالجة بجرعة دون قاتلة من عسل Manuka أن خلايا S. aureus وBacillus subtilis كانت أصغر بكثير وأكثر عرضة لامتلاك DNA متكثف مقارنةً بالخلايا النامية من دون عسل (Lu et al., 2013). ومن الصعب إجراء مقارنة مباشرة بين هاتين الدراستين لأنهما استخدمتا كميات مختلفة من العسل وفترات معالجة مختلفة، لكن النتائج إجمالًا تشير إلى انفصال النمو عن انقسام الخلية، وهو ما يُلاحظ غالبًا استجابةً للإجهادات الغذائية والبيئية (Silva-Rocha and de Lorenzo, 2010).
أُفيد بأن معالجة العسل تتسبب في أن تُظهر مزارع النوعين سالبَي الغرام E. coli وP. aeruginosa خلايا أقصر وأطول من المعتاد (Lu et al., 2013). ومن المثير للاهتمام أنه رغم أن P. aeruginosa يبدو أقل حساسية للتثبيط بالعسل من الأنواع الأخرى، فقد لوحظت تغيرات خلوية عميقة باستخدام المجهر الإلكتروني النافذ والمجهر الإلكتروني الماسح، بما في ذلك أخاديد وانتفاخات (بروزات في الأغشية البلازمية الخلوية) على سطح الخلية، وكمية كبيرة من الحطام خارج الخلوي، ما يشير إلى تحلل الخلايا (Henriques et al., 2011). وتأكد ذلك في دراسة لاحقة باستخدام صبغة BacLight الفلورية للخلايا الحية والميتة والمجهر متحد البؤر، رغم أن هذه الدراسة أظهرت أيضًا بقاء عدد كبير نسبيًا من الخلايا الحية. استخدمت هذه الدراسات عسلًا بتركيز 20% (وزن/حجم)، وهو أعلى من التركيز المثبط الأدنى لسلالة P. aeruginosa لديها، وكان من المتوقع حدوث تثبيط وموت كبيرين. ومع ذلك، أظهر الفحص المجهري بالقوة الذرية (AFM)، باستخدام مستويات دون قاتلة للبكتيريا، تشوهًا خلويًا وانتفاخًا كبيرين حتى في الخلايا المعالجة بتركيزي التركيز المثبط الأدنى (12%) ونصف التركيز المثبط الأدنى (6%)، إلى جانب تحلل خلوي كبير (Roberts et al., 2012). ودعمت هذا التدهور الظاهر في خلية P. aeruginosa نتائج تحليل تفاعل البوليميراز المتسلسل الكمي، التي أظهرت انخفاضًا بمقدار عشرة أضعاف في تنظيم oprF لدى الخلايا المعالجة بالعسل؛ إذ يرمّز هذا الجين لبورين في الغشاء الخارجي مهم للاستقرار البنيوي (Jenkins et al., 2015a).
تُقيّم تحليلات «أوميكس» استجابة الخلية الكاملة للتثبيط بالعسل
لقد أحدثت القدرة على تقييم نواتج الخلية بأكملها تحولًا جذريًا في دراسة التفاعلات بين الأدوية ومسببات الأمراض، وهي ذات قيمة خاصة للمنتجات الطبيعية المعقدة مثل العسل، حيث يُرجَّح أن تؤثر في عمليات متعددة. وقد أشارت دراسات المصفوفات الدقيقة والبروتيوميات للبكتيريا المعرّضة للعسل إلى تحفيز عمليات مرتبطة بالإجهاد وكبت تخليق البروتين (Blair et al., 2009؛ Jenkins et al., 2011؛ Packer et al., 2012). وعلى الرغم من أن هذا يُعد عمومًا نمطيًا إلى حد كبير لاستجابة العوامل المثبطة، فقد أحدث العسل «بصمة» فريدة من التعبير التفاضلي شملت العديد من البروتينات ذات الوظائف الافتراضية أو غير المعروفة، مما يشير إلى آلية تأثير جديدة. وترتبط وظائف جينات أو بروتينات محددة وُجد أنها منخفضة التنظيم في تحليلات «أوميكس» لـ S. aureus وE. coli O157/H7 بالضراوة والاستشعار النصابي وتكوين الأغشية الحيوية (Lee et al., 2011؛ Jenkins et al., 2013)، بينما حدث في P. aeruginosa انخفاض في تنظيم البروتينات المشاركة في تكوين الأسواط (Roberts et al., 2015). وتُعد هذه الأنماط الظاهرية حاسمة لتمكّن مسببات الأمراض من الاستقرار وإحداث عدوى غازية، وتشير إلى أن العسل، بالإضافة إلى تثبيط النمو، يمكنه تقليل القدرة الإمراضية للبكتيريا المسببة للعدوى.
على الرغم من أن عدد تحليلات «أوميكس» التي أُجريت حتى الآن ونطاقها لا يزالان محدودين نسبيًا، فإنها تشير إلى استجابة خلوية معقدة للعسل، مع تباين كبير بين الأنواع البكتيرية المختلفة. وهناك حاجة الآن إلى مناهج متقدمة في بيولوجيا النظم تتيح وضع البيانات في سياقها، إلى جانب دراسات تحقق تستخدم تفاعل البوليميراز المتسلسل الكمي وسلالات حُذفت منها جينات، لكشف هذا التعقيد؛ وقد تكشف هذه الدراسات عن مناهج جديدة للعلاجات الدوائية الرامية إلى تثبيط نمو البكتيريا (Hudson et al., 2012).
التفاعلات بين العسل والمضادات الحيوية التقليدية
إضافةً إلى استخدام العسل كعامل منفرد، توجد إمكانية لاستخدامه لتعزيز العلاج بالمضادات الحيوية التقليدية. وقد يكون لهذا قيمة خاصة عند دمجه مع عوامل جهازية يمكن إيصالها إلى قاع الجرح عبر الدورة الدموية، بينما يُطبَّق العسل موضعيًا. ويمكن للعلاجات المركبة أيضًا خفض الجرعة العلاجية للعوامل المضادة للميكروبات ومنع تطور المقاومة، وقد تؤدي في بعض الحالات إلى تآزر دوائي، حيث يكون النشاط المشترك أكبر من مجموع النشاطين الفرديين لكل دواء من الشريكين.
أظهرت دراسات in vitro التي جمعت عسل Manuka المعتمد علاجيًا مع عوامل مضادة حيوية تأثيرًا تآزريًا مع الأوكساسيلين والتتراسيكلين والإيميبينيم والموبيروسين ضد نمو سلالة من MRSA (Jenkins and Cooper, 2012). علاوةً على ذلك، أدّى وجود تركيز دون مثبط من العسل، بالاقتران مع الأوكساسيلين، إلى إعادة سلالة MRSA إلى حساسيتها للأوكساسيلين. ووجد المؤلفون خفضًا في تنظيم mecR1، الذي يرمّز بروتينًا رابطًا للبنسلين خاصًا بـMRSA (PBP2A)، واقترحوا أن ذلك يمثل آلية لتآزر العسل. كما وُجد نشاط تآزري قوي بين عسل Manuka والريفامبيسين ضد سلالات متعددة من S. aureus، بما في ذلك العزلات السريرية وسلالات MRSA، وقد حال وجود العسل دون ظهور مقاومة للريفامبيسين in vitro (Müller et al., 2013). ولهذا أهمية سريرية، إذ يتغلغل الريفامبيسين جيدًا في الأنسجة والخُراجات ويُستخدم عادةً لعلاج حالات العدوى السطحية بالمكورات العنقودية، لكنه يسبب المقاومة بسرعة، ولذلك يجب استخدامه بالاقتران مع عامل آخر. ومن النتائج الإضافية لهذه الدراسة أن التآزر لم يكن ناتجًا عن MGO، إذ لم يكن العسل الاصطناعي المضاف إليه MGO تآزريًا مع الريفامبيسين.
إن فهم كيفية تأثير العسل في فعالية مضادات الميكروبات ذات آليات العمل المحددة جيدًا قد يعزز أيضًا فهمنا لكيفية تأثير العسل في مسببات الأمراض البكتيرية. وقد وسّع Liu et al. (2014) تحليلَ التآزر ليشمل مضادات حيوية إضافية وسلالات مختلفة من S. aureus وMRSA. واقترحوا أن زيادة الحساسية للكليندامايسين والجنتاميسين قد تنتج عن التأثير المشترك لتثبيط تصنيع البروتين بواسطة العسل مع تثبيط الريبوسومات بواسطة المضادات الحيوية، في حين أن التآزر مع المضادات الحيوية من فئة β-لاكتام قد يُعزى إلى زيادة الإجهاد التأكسدي الناجم عن كلا العاملين. وبما أن سلالات S. aureus وMRSA كانت متساوية الحساسية لمزيج الأوكساسيلين والعسل، فقد بدا أن التآزر لا يُرجح أن يكون ناجمًا عن خفض تنظيم PBP2A. ومع ذلك، لم تُسجَّل في عزلة سريرية واحدة من MRSA زيادة في الحساسية للكليندامايسين أو الجنتاميسين عند وجود العسل، وهو أمر لافت لأنه يمثل أول حالة مُبلَّغ عنها لوجود اختلاف في استجابة MRSA للعسل مقارنةً بـ S. aureus. وسيكون بحث هذا الاختلاف الخاص بالسلالة باستخدام تحليلات النسخ الجيني أو البروتيوميات مسارًا مثيرًا للاهتمام في الأبحاث المستقبلية (Liu et al., 2014).
أدلة على الفعالية من الدراسات على الحيوانات، وتقارير الحالات، والتجارب السريرية
تروّج الشركات التي تنتج عسل Manuka وتسوقه لمعايير أخلاقية عالية، وتثبط استخدام النماذج الحيوانية لدراسة العدوى والتئام الجروح. ومع ذلك، استُخدم عسل Manuka لعلاج الحيوانات المصابة بجروح جراحية أو عرضية، ولا سيما الخيول، مع نتائج إيجابية (Dart et al., 2015؛ Bischofberger et al., 2016). وقد أشارت تقارير حالات استخدمت العسل لعلاج الجروح والقرحات غير الملتئمة إلى تحسن ملحوظ وزوال العدوى في الحالات التي فشلت فيها المضادات الحيوية التقليدية (Regulski, 2008؛ Smith et al., 2009). ومع ذلك، ورغم ذلك والأدلة المستمدة من نماذج عديدة in vitro وin vivo التي تُظهر أن العسل يقتل مسببات الأمراض المسببة لمشكلات في الجروح، فإن البيانات السريرية المتينة المتعلقة بعسل Manuka شحيحة. وهناك أسباب مختلفة لذلك، منها الصعوبات التقنية في إجراء تجربة مزدوجة التعمية مضبوطة بالغفل على مادة مميزة مثل العسل، والاعتبارات الأخلاقية، وقلة اهتمام الممارسين السريريين، والتوازن بين التكلفة والفائدة بالنسبة إلى شركات العسل التي ينصب تركيزها على المنتجات الطبيعية والمبيعات المتاحة دون وصفة طبية، حيث يحظى عسل Manuka والضمادات المرتبطة به بسعر مرتفع بالفعل. وقد تتغير هذه العوامل مع تآكل خيارات العلاج الحالية بسبب مقاومة المضادات الحيوية، ومع لفت البحوث الجارية التي تسلط الضوء على إمكانات العسل انتباه الممارسين الطبيين إليه.
الثغرات والفرص الناشئة في دراسة العسل
أُحرز تقدم كبير مؤخرًا في فهمنا للعسل العلاجي، إلا أن استخدامه في الطب السريري لا يزال محدودًا، حتى عندما تبدأ المضادات الحيوية التقليدية في فقدان فعاليتها. وتعقّد تركيبة العسل، التي تُعدّ على الأرجح أعظم نقاط قوته في قتل مسببات الأمراض المتنوعة ومنع المقاومة، دراسةَ فعاليته؛ إذ يُرجّح أن تؤثر عوامل عديدة تعمل معًا في هذه الفعالية. ونحن ندعو إلى إجراء مزيد من الدراسات الآلية باستخدام عسل Manuka العلاجي المسجّل وفق الأصول، ولا سيما الدراسات التي تستخدم مناهج بيولوجيا الأنظمة غير الاختزالية، إلى جانب تحليلات كيميائية وميكروبيولوجية مفصلة، لتوضيح كيفية تأثير العسل على المستوى الجزيئي والخلوي ومستوى الجماعة، وكيف يمكن أن يختلف ذلك باختلاف سلالات وأنواع مسببات الأمراض الميكروبية، وكيف تستجيب الخلية المضيفة (الجدول 2). ويمكن للمعلومات المستخلصة من هذه الدراسات أن توجّه العلاج وتوفّر البيانات السريرية اللازمة لإدخال العسل في الطب السائد؛ بحيث لا يعود علاجًا بديلًا يُستخدم فقط بعد فشل جميع الخيارات الأخرى.
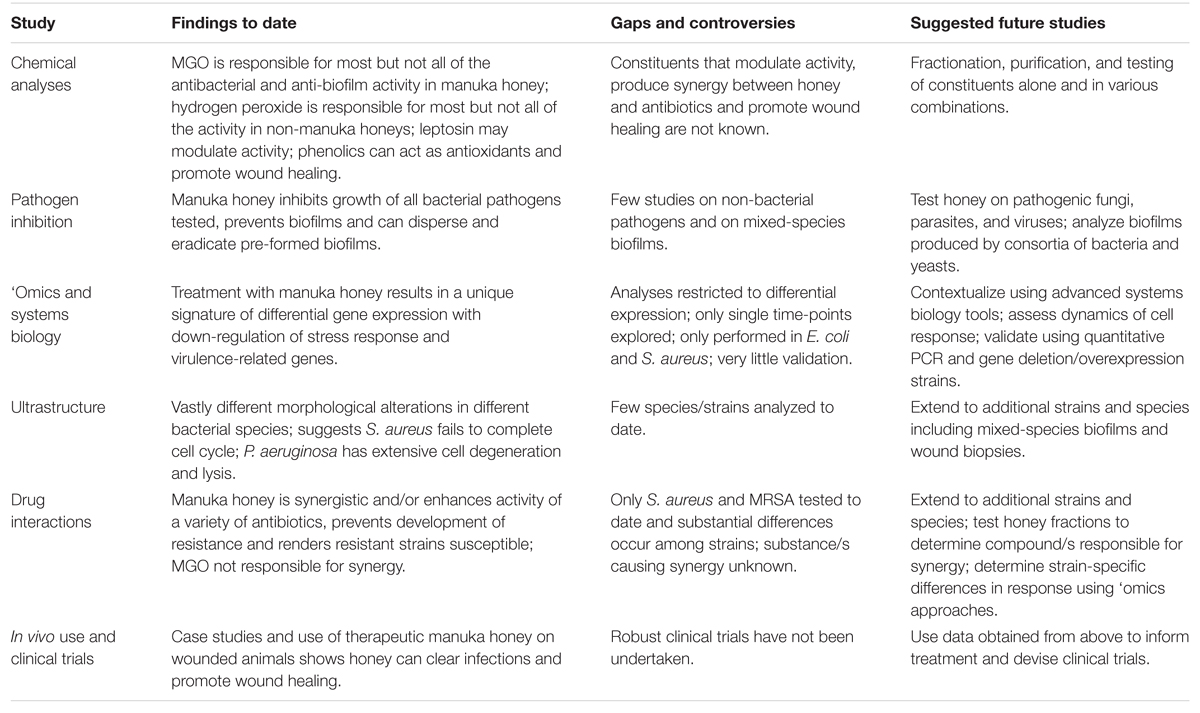
الجدول 2. دراسات عسل Manuka: النتائج، والثغرات، والدراسات المستقبلية.
مساهمات المؤلفين
كتب هذه المراجعة كل من DC وSB وNNC وDB وPB، وراجعها نقديًا كل من RS وEH.
التمويل
يتلقى NNC دعمًا للراتب من مؤسسة البحوث والتنمية للصناعات الريفية – برنامج نحل العسل (المنحة PRJ-009186).
بيان تضارب المصالح
يتلقى DC وPB وEH منحًا ودعمًا غير مالي في شكل عسل Manuka من شركتي Comvita NZ Limited وCapilano Honey Limited؛ ويعمل RS لدى Comvita NZ Limited، التي تتاجر بعسل Manuka ذي الدرجة الطبية (Medihoney).
يعلن بقية المؤلفين أن البحث أُجري في غياب أي علاقة تجارية أو مالية يمكن اعتبارها تضاربًا محتملًا في المصالح.
الاختصار
ESBL، إنزيم بيتا-لاكتاماز ممتد الطيف؛ MBC، الحد الأدنى للتركيز القاتل للبكتيريا؛ MGO، ميثيل غليوكسال؛ MIC، الحد الأدنى للتركيز المثبط؛ MRSA، Staphylococcus aureus المقاوم للميثيسيلين؛ MRSE، Staphylococcus epidermis المقاوم للميثيسيلين؛ NPA، النشاط غير المعتمد على البيروكسيد؛ VRE، Enterococcus المقاوم للفانكومايسين.
المراجع
Adams، C. J. وBoult، C. H. وDeadman، B. J. وFarr، J. M. وGrainger، M. N. C. وManley-Harris، M. وآخرون. (2008). عزل وتوصيف الجزء النشط حيويًا من عسل Manuka النيوزيلندي (Leptospermum scoparium) باستخدام HPLC. Carbohydr. Res. 343، 651–659. doi: 10.1016/j.carres.2007.12.011
Adams، C. J. وManley-Harris، M. وMolan، P. C. (2009). أصل ميثيل غليوكسال في عسل Manuka النيوزيلندي (Leptospermum scoparium). Carbohydr. Res. 344، 1050–1053. doi: 10.1016/j.carres.2009.03.020
Al Somal، N. وColey، K. E. وMolan، P. C. وHancock، B. M. (1994). قابلية Helicobacter pylori للنشاط المضاد للبكتيريا في عسل Manuka. J. R. Soc. Med. 87، 9–12.
Allen، K. وMolan، P. وReid، G. (1991). مسح للنشاط المضاد للبكتيريا لبعض أنواع العسل النيوزيلندي. J. Pharm. Pharmacol.43، 817–822. doi: 10.1111/j.2042-7158.1991.tb03186.x
Allen, K. L.، وMolan, P. C. (1997). حساسية البكتيريا المسببة لالتهاب الضرع للنشاط المضاد للبكتيريا في العسل. N. Z. J. Agric. Res. 40، 537–540. doi: 10.1080/00288233.1997.9513276
Anthimidou, E.، وMossialos, D. (2012). النشاط المضاد للبكتيريا للعسل اليوناني والقبرصي ضد Staphylococcus aureus وPseudomonas aeruginosa مقارنةً بعسل Manuka. J. Med. Food 16، 42–47. doi: 10.1089/jmf.2012.0042
Balan, P., Mal, G., Das, S.، وSingh, H. (2016). الأنشطة المضادة للميكروبات التآزرية والتراكمية للكركمين وعسل Manuka وبروتينات مصل اللبن. J. Food Biochem. doi: 10.1111/jfbc.12249
Bassam, Z., Zohra, B. I.، وSaada, A.-A. (1997). تأثيرات العسل على طفيليات الليشمانيا: دراسة في المختبر. Trop. Doctor27، 36–38.
Biglari, B., Moghaddam, A., Santos, K., Blaser, G., Büchler, A., Jansen, G. وآخرون (2013). دراسة رصدية مستقبلية متعددة المراكز حول العناية المتخصصة بالجروح باستخدام العسل (Medihoney). Int. Wound J. 10، 252–259. doi: 10.1111/j.1742-481X.2012.00970.x
Bischofberger, A., Dart, C., Horadagoda, N., Perkins, N., Jeffcott, L., Little, C. وآخرون (2016). تأثير هلام عسل Manuka على تركيزات عامل النمو المحوّل β1 وβ3، وأعداد البكتيريا، والتشكل النسيجي المرضي للجروح الجلدية كاملة السماكة الملوثة في الأطراف السفلية للخيول. Aust. Vet. J. 94، 27–34. doi: 10.1111/avj.12405
Blair, S.، Cokcetin, N.، Harry, E.، وCarter, D. (2009). النشاط المضاد للبكتيريا غير المعتاد لعسل Leptospermum الطبي: الطيف المضاد للبكتيريا، والمقاومة، وتحليل الترانسكريبتوم. Eur. J. Clin. Microbiol. Infect. Dis. 28، 1199–1208. doi: 10.1007/s10096-009-0763-z
Blair, S. E.، وCarter, D. A. (2005). إمكانات العسل في تدبير الجروح والعدوى. J. Austral. Infect. Control 10، 24–31.
Brady, N.، Molan, P.، وHarfoot, C. (1996). حساسية الفطريات الجلدية للنشاط المضاد للميكروبات لعسل Manuka وأنواع العسل الأخرى. Pharm. Pharmacol. Commun. 2، 471–473.
Carnwath, R.، Graham, E. M.، Reynolds, K.، وPollock, P. J. (2014). النشاط المضاد للميكروبات للعسل ضد العزلات البكتيرية الشائعة من جروح الخيول. Vet. J. 199، 110–114. doi: 10.1016/j.tvjl.2013.07.003
Chen, C.، Campbell, L.، Blair, S. E.، وCarter, D. A. (2012). تأثير المعالجة الحرارية في الخصائص المضادة للميكروبات للعسل. Front. Microbiol. 3:265. doi: 10.3389/fmicb.2012.00265
Cooper, R.، Jenkins, L.، Henriques, A.، Duggan, R.، وBurton, N. (2010). غياب مقاومة البكتيريا للعسل الطبي من Manuka. Eur. J. Clin. Microbiol. Infect. Dis. 29، 1237–1241. doi: 10.1007/s10096-010-0992-1
Cooper, R. A.، Halas, E.، وMolan, P. C. (2002a). فعالية العسل في تثبيط سلالات Pseudomonas aeruginosa المعزولة من الحروق المصابة. J. Burn Care Rehabil. 23، 366–370. doi: 10.1097/00004630-200211000-00002
Cooper، R. A.، وMolan، P. C. (1999). استخدام العسل كمطهر في علاج عدوى Pseudomonas. J. Wound Care 8، 161–164. doi: 10.12968/jowc.1999.8.4.25867
Cooper، R. A.، Molan، P. C.، وHarding، K. G. (1999). النشاط المضاد للبكتيريا للعسل ضد سلالات Staphylococcus aureus من الجروح المصابة. J. R. Soc. Med. 92، 283–285.
Cooper، R. A.، Molan، P. C.، وHarding، K. G. (2002b). حساسية المكورات إيجابية الغرام ذات الأهمية السريرية، المعزولة من الجروح، للعسل. J. Appl. Microbiol. 93، 857–863. doi: 10.1046/j.1365-2672.2002.01761.x
Cooper، R. A.، Wigley، P.، وBurton، N. F. (2000). قابلية سلالات Burkholderia cepacia متعددة المقاومة للعسل. Lett. Appl. Microbiol. 31، 20–24. doi: 10.1046/j.1472-765x.2000.00756.x
Dart، A.، Bischofberger، A.، Dart، C.، وJeffcott، L. (2015). مراجعة للأبحاث المتعلقة بالتئام جروح الخيول بالالتئام بالنية الثانية باستخدام عسل Manuka: التوصيات الحالية والتطبيقات المستقبلية. Equine Vet. Educ. 27، 658–664. doi: 10.1111/eve.12379
Estevinho، L.، Pereira، A. P.، Moreira، L.، Dias، L. G.، وPereira، E. (2008). التأثيرات المضادة للأكسدة والميكروبات لمستخلصات المركبات الفينولية من عسل شمال شرق البرتغال. Food Chem. Toxicol. 46، 3774–3779. doi: 10.1016/j.fct.2008.09.062
French, V. M.، و Cooper, R. A.، و Molan, P. C. (2005). النشاط المضاد للبكتيريا للعسل ضد المكورات العنقودية سالبة التخثر. J. Antimicrobial Chemother. 56، 228–231. doi: 10.1093/jac/dki193
George, N. M.، و Cutting, K. F. (2007). عسل مضاد للبكتيريا (Medihoney): نشاط in vitro ضد العزلات السريرية لـ MRSA وVRE وغيرها من الكائنات سالبة الغرام متعددة المقاومة، بما في ذلك Pseudomonas aeruginosa. Wounds 19:231.
Halstead, F. D., Webber, M. A., Rauf, M.، و Burt, R.، و Dryden, M.، و Oppenheim, B. A. (2016). نشاط in vitro لعسل مُهندَس، وأنواع عسل للاستخدام الطبي، وضمادات جروح مضادة للميكروبات، ضد عزلات بكتيرية سريرية منتجة للأغشية الحيوية. J. Wound Care 25، 93–102. doi: 10.12968/jowc.2016.25.2.93
Hammond, E. N.، و Donkor, E. S. (2013). التأثير المضاد للبكتيريا لعسل Manuka على Clostridium difficile. BMC Res. 6:188. doi: 10.1186/1756-0500-6-188
Henriques, A. F., Jenkins, R. E., Burton, N. F.، و Cooper, R. A. (2010). التأثيرات داخل الخلايا لعسل Manuka على Staphylococcus aureus. Eur. J. Clin. Microbiol. Infect. Dis. 29، 45–50. doi: 10.1007/s10096-009-0817-2
Henriques, A. F., Jenkins, R. E., Burton, N. F.، و Cooper, R. A. (2011). تأثير عسل Manuka على بنية Pseudomonas aeruginosa. Eur. J. Clin. Microbiol. Infect. Dis. 30، 167–171. doi: 10.1007/s10096-010-1065-1
Hudson، N. J.، Dalrymple، B. P.، وReverter، A. (2012). ما وراء التعبير التفاضلي: السعي إلى الطفرات السببية والجزيئات المؤثرة. BMC Genomics 13:356. doi: 10.1186/1471-2164-13-356
Irish، J.، Blair، S.، وCarter، D. (2011). النشاط المضاد للبكتيريا للعسل المستخلص من النباتات الأسترالية. PLoS ONE 6:e18229. doi: 10.1371/journal.pone.0018229
Irish، J.، Carter، D. A.، Shokohi، T.، وBlair، S. E. (2006). للعسل تأثير مضاد للفطريات ضد أنواع Candida. Med. Mycol.44، 289–291. doi: 10.1080/13693780600931986
Jenkins، R.، Burton، N.، وCooper، R. (2011). تأثير عسل Manuka في تعبير بروتين الإجهاد الشامل A لدى المكورات العنقودية الذهبية المقاومة للميثيسيلين Staphylococcus aureus. Int. J. Antimicrob. Agents 37، 373–376. doi: 10.1016/j.ijantimicag.2010.11.036
Jenkins، R.، Burton، N.، وCooper، R. (2013). أظهر التحليل البروتيومي والجينومي للمكورات العنقودية الذهبية المقاومة للميثيسيلين Staphylococcus aureus (MRSA)، التي عُرّضت لعسل Manuka في المختبر، انخفاضًا في تنظيم مؤشرات الضراوة. J. Antimicrobial Chemother. 69، 603–615. doi: 10.1093/jac/dkt430
جينكينز، R.، وكوبر، R. (2012). تحسين فعالية المضادات الحيوية ضد مسببات عدوى الجروح باستخدام عسل Manuka في المختبر. PLoS ONE 7:e45600. doi: 10.1371/journal.pone.0045600
جينكينز، R.، روبرتس، A.، وبراون، H. L. (2015a). حول التأثيرات المضادة للبكتيريا لعسل Manuka: رؤى آلية. Res. Rep. Biol. 6، 215–224. doi: 10.2147/RRB.S75754
جينكينز، R.، ووتون، M.، هاو، R.، وكوبر، R. (2015b). عرض قابلية العزلات السريرية المأخوذة من مرضى التليف الكيسي لعسل Manuka. Arch. Microbiol. 197، 597–601. doi: 10.1007/s00203-015-1091-6
كالابوس، M. P. (2008). ثنائي الجذور الحرة وميثيل غليوكسال. Chem. Biol. Interact. 171، 251–271. doi: 10.1016/j.cbi.2007.11.009
كاتو، Y.، أوميدا، N.، مايدا، A.، ماتسوموتو، D.، كيتاموتو، N.، وكيكوزاكي، H. (2012). تحديد غليكوسيد جديد، ليبتوسين، بوصفه واسمًا كيميائيًا لعسل Manuka. J. Agric. Food Chem. 60، 3418–3423. doi: 10.1021/jf300068w
كيليتي، S. J.، دوفال، M.، تشان، F. T.، فيريس، W.، وسلينغر، R. (2011). ميثيل غليوكسال: (العامل النشط في عسل Manuka) نشاط في المختبر ضد الأغشية الحيوية البكتيرية. Int. Forum Allergy Rhinol. 1، 348–350. doi: 10.1002/alr.20073
Kronda، J. M.، Cooper، R. A.، وMaddocks، S. E. (2013). يثبط عسل Manuka إنتاج السيدروفورات لدى Pseudomonas aeruginosa. J. Appl. Microbiol. 115، 86–90. doi: 10.1111/jam.12222
Kwakman، P. H.، te Velde، A. A.، de Boer، L.، Vandenbroucke-Grauls، C. M.، وZaat، S. A. (2011). لعسلين طبيين رئيسيين آليتا قتل بكتيري مختلفتان. PLoS ONE 6:e17709. doi: 10.1371/journal.pone.0017709
Lee، J.-H.، Park، J.-H.، Kim، J.-A.، Neupane، G. P.، Cho، M. H.، Lee، C.-S.، وآخرون. (2011). التراكيز المنخفضة من العسل تقلل تكوّن الأغشية الحيوية، والاستشعار النصابي، والضراوة لدى Escherichia coli O157: H7. Biofouling 27، 1095–1104. doi: 10.1080/08927014.2011.633704
Lin، S. M.، Molan، P. C.، وCursons، R. T. (2011). القابلية المضبوطة in vitro لمسببات أمراض الجهاز الهضمي للتأثير المضاد للبكتيريا لعسل Manuka. Eur. J. Clin. Microbiol. Infect. Dis. 30، 569–574. doi: 10.1007/s10096-010-1121-x
Liu، M.، Lu، J.، Müller، P.، Turnbull، L.، Burke، C. M.، Schlothauer، R. C.، وآخرون. (2014). اختلافات خاصة بالمضادات الحيوية في استجابة Staphylococcus aureus للعلاج بمضادات الميكروبات الممزوجة بعسل Manuka. Front. Microbiol. 5:779. doi: 10.3389/fmicb.2014.00779
Lu, J., Carter, D. A., Turnbull, L., Rosendale, D., Hedderley, D., Stephens, J.، وآخرون (2013). يختلف تأثير عسل الكانوكا والمانوكا والبرسيم النيوزيلندي على ديناميكيات نمو البكتيريا وشكل الخلايا تبعًا للنوع. PLoS ONE8:e55898. doi: 10.1371/journal.pone.0055898
Lu, J., Turnbull, L., Burke, C. M., Liu, M., Carter, D. A., Schlothauer, R. C.، وآخرون (2014). يمكن لعسل Manuka القضاء على الأغشية الحيوية التي تنتجها سلالات Staphylococcus aureus ذات قدرات مختلفة على تكوين الأغشية الحيوية. PeerJ 2:e326. doi: 10.7717/peerj.326
Maddocks, S. E., Jenkins, R. E., Rowlands, R. S., Purdy, K. J.، و Cooper, R. A. (2013). يثبط عسل Manuka التصاق بكتيريا الجروح المهمة طبيًا وغزوها in vitro. Fut. Microbiol. 8، 1523–1536. doi: 10.2217/fmb.13.126
Maddocks, S. E., Lopez, M. S., Rowlands, R. S.، و Cooper, R. A. (2012). يثبط عسل Manuka تطوّر الأغشية الحيوية لـ Streptococcus pyogenes ويؤدي إلى انخفاض التعبير عن بروتينين من بروتينات الارتباط بالفيبرونيكتين. Microbiology 158، 781–790. doi: 10.1099/mic.0.053959-0
Majtan, J. (2014). العسل: مُعدِّل للمناعة في التئام الجروح. Wound Repair Regenerat. 22، 187–192. doi: 10.1111/wrr.12117
ماجتان، ي.، بوهوفا، ي.، هورنياتشكوڤا، م.، كلاوديني، ي.، وماجتان، ف. (2014a). تأثيرات العسل المضادة للأغشية الحيوية ضد مسببات عدوى الجروح Proteus mirabilis وEnterobacter cloacae. Phytother. Res. 28، 69–75. doi: 10.1002/ptr.4957
ماجتان، ي.، بوهوفا، ي.، بروتشازكا، إ.، وكلاوديني، ي. (2014b). قد يؤثر ميثيل غليوكسال في تراكم بيروكسيد الهيدروجين في عسل Manuka من خلال تثبيط أوكسيداز الغلوكوز. J. Med. Food 17، 290–293. doi: 10.1089/jmf.2012.0201
ماجتان، ي.، كلاوديني، ي.، بوهوفا، ي.، كوهوتوفا، ل.، دزوروڤا، م.، سيديفا، م.، وآخرون. (2012). تعديلات مُستحثة بميثيل غليوكسال في مكونات بروتينية مهمة لدى نحل العسل في عسل Manuka: آثار علاجية محتملة. Fitoterapia 83، 671–677. doi: 10.1016/j.fitote.2012.02.002
ماجتان، ي.، ماجتانوفا، ل.، بوهوفا، ي.، وماجتان، ف. (2011). عسل الندوة العسلية كعامل مضاد للبكتيريا بقوة لاستئصال عزلات Stenotrophomonas maltophilia المقاومة لعدة أدوية لدى مرضى السرطان. Phytother. Res. 25، 584–587. doi: 10.1002/ptr.3304
مالون، ل. أ.، غيت هاوس، هـ. س.، وتريغيدغا، إ. ل. (2001). تأثيرات الوقت ودرجة الحرارة والعسل على Nosema apis (الأبواغ الدقيقة: Nosematidae)، وهو طفيلي نحل العسل، Apis mellifera (غشائيات الأجنحة: Apidae). J. Invertebrate Pathol. 77، 258–268. doi: 10.1006/jipa.2001.5028
Mavric، E.، Wittmann، S.، Barth، G.، وHenle، T. (2008). تحديد وقياس ميثيل غليوكسال باعتباره المكوّن الغالب المضاد للبكتيريا في عسل Manuka (Leptospermum scoparium) من نيوزيلندا. أبحاث الغذاء والتغذية الجزيئية 52، 483–489. doi: 10.1002/mnfr.200700282
Molan، P. M. (2008). تفسير لعدم إظهار مستوى MGO في عسل Manuka للنشاط المضاد للبكتيريا. نحّال نيوزيلندي 16، 11–13.
Mullai، V.، وMenon، T. (2007). النشاط القاتل للبكتيريا لأنواع مختلفة من العسل ضد العزلات السريرية والبيئية لـPseudomonas aeruginosa. مجلة الطب البديل والتكميلي 13، 439–442. doi: 10.1089/acm.2007.6366
Müller، P.، Alber، D. G.، Turnbull، L.، Schlothauer، R. C.، Carter، D. A.، Whitchurch، C. B.، وآخرون. (2013). التآزر بين Medihoney والريفامبيسين ضد Staphylococcus aureus المقاوم للميثيسيلين (MRSA). PLoS ONE 8:e57679. doi: 10.1371/journal.pone.0057679
Mundo، M. A.، Padilla-Zakour، O. I.، وWorobo، R. W. (2004). تثبيط نمو مسببات الأمراض المنقولة بالغذاء والكائنات المسببة لفساد الأغذية بواسطة أنواع مختارة من العسل الخام. المجلة الدولية لعلم أحياء الأغذية الدقيقة 97، 1–8. doi: 10.1016/j.ijfoodmicro.2004.03.025
Nilforoushzadeh, M. A., Jaffary, F., Moradi, S., Derakhshan, R.، وHaftbaradaran, E. (2007). تأثير تطبيق العسل الموضعي إلى جانب الحقن داخل الآفة بغلوكانتيم في علاج داء الليشمانيات الجلدي. BMC Complement Altern. Med. 7:1. doi: 10.1186/1472-6882-7-1
Norton, A. M., McKenzie, L. N., Brooks, P. R.، وPappalardo, L. J. (2015). تقدير كمية ثنائي هيدروكسي الأسيتون في رحيق Leptospermum الأسترالي باستخدام كروماتوغرافيا سائلة عالية الأداء. J. Agric. Food Chem. 63، 6513–6517. doi: 10.1021/acs.jafc.5b01930
Okhiria, O., Henriques, A., Burton, N., Peters, A.، وCooper, R. (2009). يعدّل العسل الأغشية الحيوية لـ Pseudomonas aeruginosa بطريقة تعتمد على الوقت والجرعة. J. ApiProduct. ApiMedical Sci. 1، 6–10. doi: 10.3896/IBRA.4.01.1.03
Osato, M. S., Reddy, S. G., وGraham, D. Y. (1999). التأثير التناضحي للعسل على نمو وحيوية Helicobacter pylori. Dig. Dis. Sci. 44، 462–464. doi: 10.1023/A:1026676517213
Packer, J. M., Irish, J., Herbert, B. R., Hill, C., Padula, M., Blair, S. E., وآخرون. (2012). التأثير المضاد للبكتيريا غير المعتمد على البيروكسيد لعسل Manuka على بروتيوم Staphylococcus aureus. Int. J. Antimicrob. Agents 40، 43–50. doi: 10.1016/j.ijantimicag.2012.03.012
Regulski, M. (2008). ضمادة جديدة للعناية بالجروح لعلاج تقرحات الساق المزمنة. Podiatry Manag. 27، 235–246.
روبرتس، أ. إ.، مادوكس، س. إ.، وكوبر، ر. أ. (2012). عسل Manuka قاتل للجراثيم ضد Pseudomonas aeruginosa ويؤدي إلى اختلاف في التعبير عن oprF وalgD. علم الأحياء الدقيقة. 158، 3005–3013. doi: 10.1099/mic.0.062794-0
روبرتس، أ. إ. ل.، مادوكس، س. إ.، وكوبر، ر. أ. (2015). يقلل عسل Manuka من حركة Pseudomonas aeruginosa عبر تثبيط الجينات المرتبطة بالأسواط. مجلة العلاج الكيميائي المضاد للميكروبات. 70، 716–725. doi: 10.1093/jac/dku448
ساجد، م.، وعظيم، م. ك. (2012). توصيف النشاط القاتل للديدان الخيطية للعسل الطبيعي. مجلة الكيمياء الزراعية والغذائية. 60، 7428–7434. doi: 10.1021/jf301653n
شاهزاد، أ.، وكوهرس، ر. ج. (2012). النشاط المضاد للفيروسات للعسل في المختبر ضد فيروس الحماق النطاقي (VZV): دراسة في الطب الانتقالي لعلاج محتمل للحزام الناري. الطب الانتقالي الحيوي. 3:2.
شيرلوك، أو.، دولان، أ.، أثمان، ر.، باور، أ.، غثين، غ.، كاومان، س.، وآخرون. (2010). مقارنة النشاط المضاد للميكروبات لعسل أولمو من تشيلي وعسل Manuka ضد Staphylococcus aureus المقاوم للميثيسيلين، وEscherichia coli وPseudomonas aeruginosa. BMC للطب التكميلي والبديل. 10:47. doi: 10.1186/1472-6882-10-47
سيلفا-روشا، ر.، ولورينزو، ف. (2010). الضوضاء والمتانة في الشبكات التنظيمية لدى بدائيات النوى. المراجعة السنوية لعلم الأحياء الدقيقة. 64، 257–275. doi: 10.1146/annurev.micro.091208.073229
Smith، T.، Hanft، J. R.، وLegel، K. (2009). عسل Leptospermum الموضعي في جروح الساق الوريدية المستعصية: سلسلة حالات أولية. Adv. Skin Wound Care 22، 68–71. doi: 10.1097/01.ASW.0000345283.05532.9a
Soffer، A. (1976). كلاب الشيواوا واللاتريل والعلاج بالاستخلاب والعسل من بولدر، كولورادو [افتتاحية]. Arch. Intern. Med.136، 865–866. doi: 10.1001/archinte.136.8.865
Sojka، M.، Valachova، I.، Bucekova، M.، وMajtan، J. (2016). فعالية العسل والديفنسين-1 المشتق من النحل المضادة للأغشية الحيوية في الأغشية الحيوية متعددة الأنواع في الجروح. J. Med. Microbiol. doi: 10.1099/jmm.0.000227 [نُشر إلكترونيًا قبل الطباعة].
Stephens، J. M.، Schlothauer، R. C.، Morris، B. D.، Yang، D.، Fearnley، L.، Greenwood، D. R.، وآخرون. (2010). المركبات الفينولية وميثيل غليوكسال في بعض أنواع عسل Manuka وKanuka النيوزيلندية. Food Chem. 120، 78–86. doi: 10.1016/j.foodchem.2009.09.074
Tan، H. T.، Rahman، R. A.، Gan، S. H.، Halim، A. S.، Hassan، S. A.، Sulaiman، S. A.، وآخرون. (2009). الخصائص المضادة للبكتيريا لعسل التوالانغ الماليزي ضد الكائنات الحية الدقيقة المسببة لعدوى الجروح والأمعاء، مقارنةً بعسل Manuka. BMC Complement Altern. Med. 9:34. doi: 10.1186/1472-6882-9-34
Watanabe، K.، وRahmasari، R.، وMatsunaga، A.، وHaruyama، T.، وKobayashi، N. (2014). التأثيرات المضادة لفيروس الإنفلونزا للعسل in vitro: نشاط مرتفع وفعّال لعسل Manuka. Arch. Med. Res. 45، 359–365. doi: 10.1016/j.arcmed.2014.05.006
Wilkinson، J. M.، وCavanagh، H. M. A. (2005). النشاط المضاد للبكتيريا لـ13 نوعًا من العسل ضد Escherichia coli وPseudomonas aeruginosa. J. Med. Food 8، 100–103. doi: 10.1089/jmf.2005.8.100
Williams، S.، وKing، J.، وRevell، M.، وManley-Harris، M.، وBalks، M.، وJanusch، F.، وآخرون. (2014). الاختلافات الإقليمية والسنوية والفردية في محتوى ثنائي هيدروكسي الأسيتون في رحيق Manuka (Leptospermum scoparium) في نيوزيلندا. J. Agric. Food Chem. 62، 10332–10340. doi: 10.1021/jf5045958
Willix، D. J.، وMolan، P. C.، وHarfoot، C. G. (1992). مقارنة حساسية أنواع البكتيريا المسببة لعدوى الجروح للنشاط المضاد للبكتيريا في عسل Manuka وأنواع العسل الأخرى. J. Appl. Bacteriol. 73، 388–394. doi: 10.1111/j.1365-2672.1992.tb04993.x
Windsor، S.، وPappalardo، M.، وBrooks، P.، وWilliams، S.، وManley-Harris، M. (2012). تحليل جديد وميسّر لثنائي هيدروكسي الأسيتون وميثيل غليوكسال طُبّق على أنواع عسل Leptospermum الأسترالية. J. Pharmacogn. Phytother. 4، 6–11.
المصدر: عسل Manuka العلاجي: لم يعد بديلاً إلى هذا الحد - https://www.frontiersin.org/articles/10.3389/fmicb.2016.00569/full
اترك تعليقًا