Terapeutyczny miód Manuka: już nie taki alternatywny
Badania nad miodem leczniczym przeżywają obecnie znaczący renesans. Od ludowego środka, w dużej mierze odrzucanego przez medycynę głównego nurtu jako „alternatywny”, przechodzimy do rosnącego zainteresowania naukowców, praktyków klinicznych i ogółu społeczeństwa terapeutycznym zastosowaniem miodu. Istnieje kilka przyczyn tego zainteresowania: po pierwsze, narastająca oporność wielu patogenów bakteryjnych na antybiotyki skłoniła do poszukiwania i stosowania nowych środków przeciwbakteryjnych; po drugie, coraz większa liczba wiarygodnych badań i opisów przypadków wykazała, że niektóre miody są bardzo skuteczne w leczeniu ran; po trzecie, miód terapeutyczny osiąga wysoką cenę, a branża miodowa aktywnie promuje badania, które pozwolą jej to wykorzystać; wreszcie bardzo złożona i dość nieprzewidywalna natura miodu stanowi atrakcyjne wyzwanie dla naukowców laboratoryjnych. W niniejszym artykule omawiamy badania nad miodem Manuka - od badań obserwacyjnych dotyczących jego działania przeciwdrobnoustrojowego po współczesne prace eksperymentalne i mechanistyczne, których celem jest wprowadzenie miodu do medycyny głównego nurtu. Przedstawiamy obecne luki i nierozstrzygnięte kontrowersje w naszej wiedzy o działaniu miodu oraz proponujemy nowe badania, dzięki którym miód może przestać być „alternatywną” alternatywą.
Wprowadzenie
Miód był stosowany jako lek przez całą historię ludzkości. Jednym z najpowszechniejszych i najtrwalszych zastosowań terapeutycznych miodu było opatrywanie ran, niemal z pewnością ze względu na jego właściwości przeciwdrobnoustrojowe. Wraz z pojawieniem się wysoce skutecznych antybiotyków w latach 60. XX wieku miód został uznany za „bezużyteczną, lecz nieszkodliwą substancję” (Soffer, 1976). Jednak obecny i narastający kryzys oporności na antybiotyki przywrócił zainteresowanie stosowaniem miodu, zarówno jako skutecznego środka samego w sobie, jak i jako punktu wyjścia do opracowania nowych metod leczenia. Miód zwykle pozyskuje się z nektaru kwiatów i jest produkowany przez pszczoły, najczęściej przez pszczołę miodną europejską Apis mellifera; stanowi on złożoną mieszaninę cukrów, aminokwasów, związków fenolowych i innych substancji. Rodzaje miodu pozyskiwane z różnych roślin kwitnących znacznie różnią się zdolnością do zabijania bakterii, co skomplikowało piśmiennictwo dotyczące miodu i czasami utrudniało odtwarzanie wyników w różnych badaniach (Allen et al., 1991; Irish et al., 2011). Większość najnowszych badań nad mechanizmem działania miodu koncentrowała się na dobrze scharakteryzowanym, standaryzowanym aktywnym miodzie Manuka, produkowanym przez niektóre gatunki Leptospermum rodzime dla Nowej Zelandii i Australii, który został zarejestrowany jako produkt do opatrywania ran przez właściwe organy regulacyjne ds. wyrobów medycznych. Dlatego, o ile nie zaznaczono inaczej, niniejszy przegląd koncentruje się na miodzie Manuka.
Analizy chemiczne aktywnego miodu Manuka
Profesor Peter Molan z Uniwersytetu Waikato w Nowej Zelandii jako pierwszy opisał niezwykłe działanie miodu Manuka i w połowie lat 80. rozpoczął badania nad jego działaniem wobec szerokiego zakresu różnych gatunków bakterii. Chociaż było jasne, że nawet niskie stężenia miodu Manuka zabijały patogeny bakteryjne, przez wiele lat nie udawało się ustalić konkretnego składnika aktywnego odpowiedzialnego za to działanie. Wysoka zawartość cukru i niskie pH hamują wzrost drobnoustrojów, jednak działanie utrzymuje się po rozcieńczeniu tych czynników do poziomów znikomych. Wiele różnych rodzajów miodu również wytwarza nadtlenek wodoru, gdy oksydaza glukozowa pochodząca od pszczoły miodnej reaguje z glukozą i wodą. Jednak w miodzie Manuka produkcja nadtlenku wodoru jest stosunkowo niska i może zostać zneutralizowana przez katalazę, a mimo to działanie nadal się utrzymuje. Przyczyna tego pozostałego działania, określanego jako „aktywność niezależna od nadtlenku” lub NPA, została ostatecznie wyjaśniona w 2008 roku, kiedy dwa laboratoria niezależnie zidentyfikowały MGO w miodzie Manuka (Adams i in., 2008; Mavric i in., 2008). MGO powstaje w wyniku spontanicznego odwodnienia swojego prekursora, DHA, naturalnie występującego fitochemicznego składnika znajdującego się w nektarze kwiatów gatunków Leptospermum scoparium, Leptospermum polygalifolium oraz niektórych spokrewnionych gatunków Leptospermum rodzimych dla Nowej Zelandii i Australii (Adams i in., 2009; Williams i in., 2014; Norton i in., 2015). MGO może reagować w stosunkowo niespecyficzny sposób z makrocząsteczkami, takimi jak DNA, RNA i białka (Adams i in., 2008; Mavric i in., 2008; Majtan i in., 2014b), a teoretycznie może być toksyczne dla komórek ssaków (Kalapos, 2008). Nie ma jednak dowodów na uszkodzenie komórek gospodarza, gdy miód Manuka jest spożywany doustnie lub stosowany jako opatrunek na rany; miód wydaje się wręcz stymulować gojenie i zmniejszać bliznowacenie po zastosowaniu na rany (Biglari i in., 2013; Majtan, 2014; Dart i in., 2015). Nie wiadomo, w jaki sposób wywołuje tę pozornie wybiórczą toksyczność wobec komórek bakteryjnych.
Wysokie poziomy MGO lub nadtlenku wodoru zwykle oznaczają, że miód wykazuje największą aktywność, jednak korelacja nie zawsze jest idealna, co sugeruje, że inne składniki miodu mogą modulować jego aktywność (Molan, 2008; Kwakman i in., 2011; Chen i in., 2012; Lu i in., 2013). Defensyna-1 pszczół, peptyd pochodzenia pszczelego o działaniu przeciwdrobnoustrojowym, odpowiada za aktywność miodu Revamil, czyli aktywnego miodu produkowanego z nieujawnionego źródła, jednak wydaje się, że w miodzie Manuka ulega modyfikacji strukturalnej i jest nieaktywna (Kwakman i in., 2011; Majtan i in., 2012). Poziom leptozyny, glikozydu występującego wyłącznie w miodzie z rodzaju Leptospermum, koreluje z jego mocą i może modulować działanie przeciwdrobnoustrojowe miodu Manuka (Kato i in., 2012). Podobnie mogą występować różne związki fenolowe o potencjalnym działaniu przeciwdrobnoustrojowym, szczególnie w miodach o ciemniejszej barwie; chociaż ich stężenia prawdopodobnie nie wystarczają, aby same w sobie hamować aktywność, mogą działać synergistycznie ze sobą lub z innymi składnikami miodu, wywołując aktywność lub zmieniając jej charakter (Estevinho i in., 2008; Stephens i in., 2010). Związki fenolowe mogą również działać jako przeciwutleniacze i być odpowiedzialne za właściwości przeciwzapalne oraz wspomagające gojenie ran miodu (Stephens i in., 2010). Należy zauważyć, że nie wszystkie gatunki Leptospermum produkują aktywny miód, a nawet w obrębie miodu z L. scoparium i L. polygalifolium poziomy MGO mogą wynosić od ∼100 do >1200 ppm (Windsor i in., 2012). Badanie aktywności miodów australijskich wykazało, że miód pozyskiwany z roślin Leptospermum rosnących w okolicach granicy Nowej Południowej Walii i Queenslandu wykazywał szczególnie wysoką aktywność, jednak nie wiadomo, czy wynika to z czynników związanych z rośliną, glebą, klimatem lub innych (Irish i in., 2011).
Hamowanie patogenów przez miód
Miód testowano in vitro na szerokim spektrum patogenów, szczególnie tych, które mogą kolonizować skórę, rany i błony śluzowe, gdzie możliwe jest miejscowe stosowanie miodu. Jak dotąd w testach in vitro stwierdzono, że miód Manuka skutecznie hamuje wszystkie zbadane problematyczne patogeny bakteryjne (podsumowanie przedstawiono w tabeli 1). Szczególnie istotne jest to, że izolaty kliniczne o fenotypach wielolekooporności (MDR) nie wykazują zmniejszonej wrażliwości na miód, co wskazuje na szerokie spektrum działania odmienne od działania jakiegokolwiek znanego środka przeciwdrobnoustrojowego (Willix et al., 1992; Blair and Carter, 2005; George and Cutting, 2007; Tan et al., 2009). Ponadto próby wyhodowania w laboratorium szczepów opornych na miód nie powiodły się, a także nie odnotowano przypadków klinicznych izolatów z nabytą opornością na miód (Blair et al., 2009; Cooper et al., 2010).
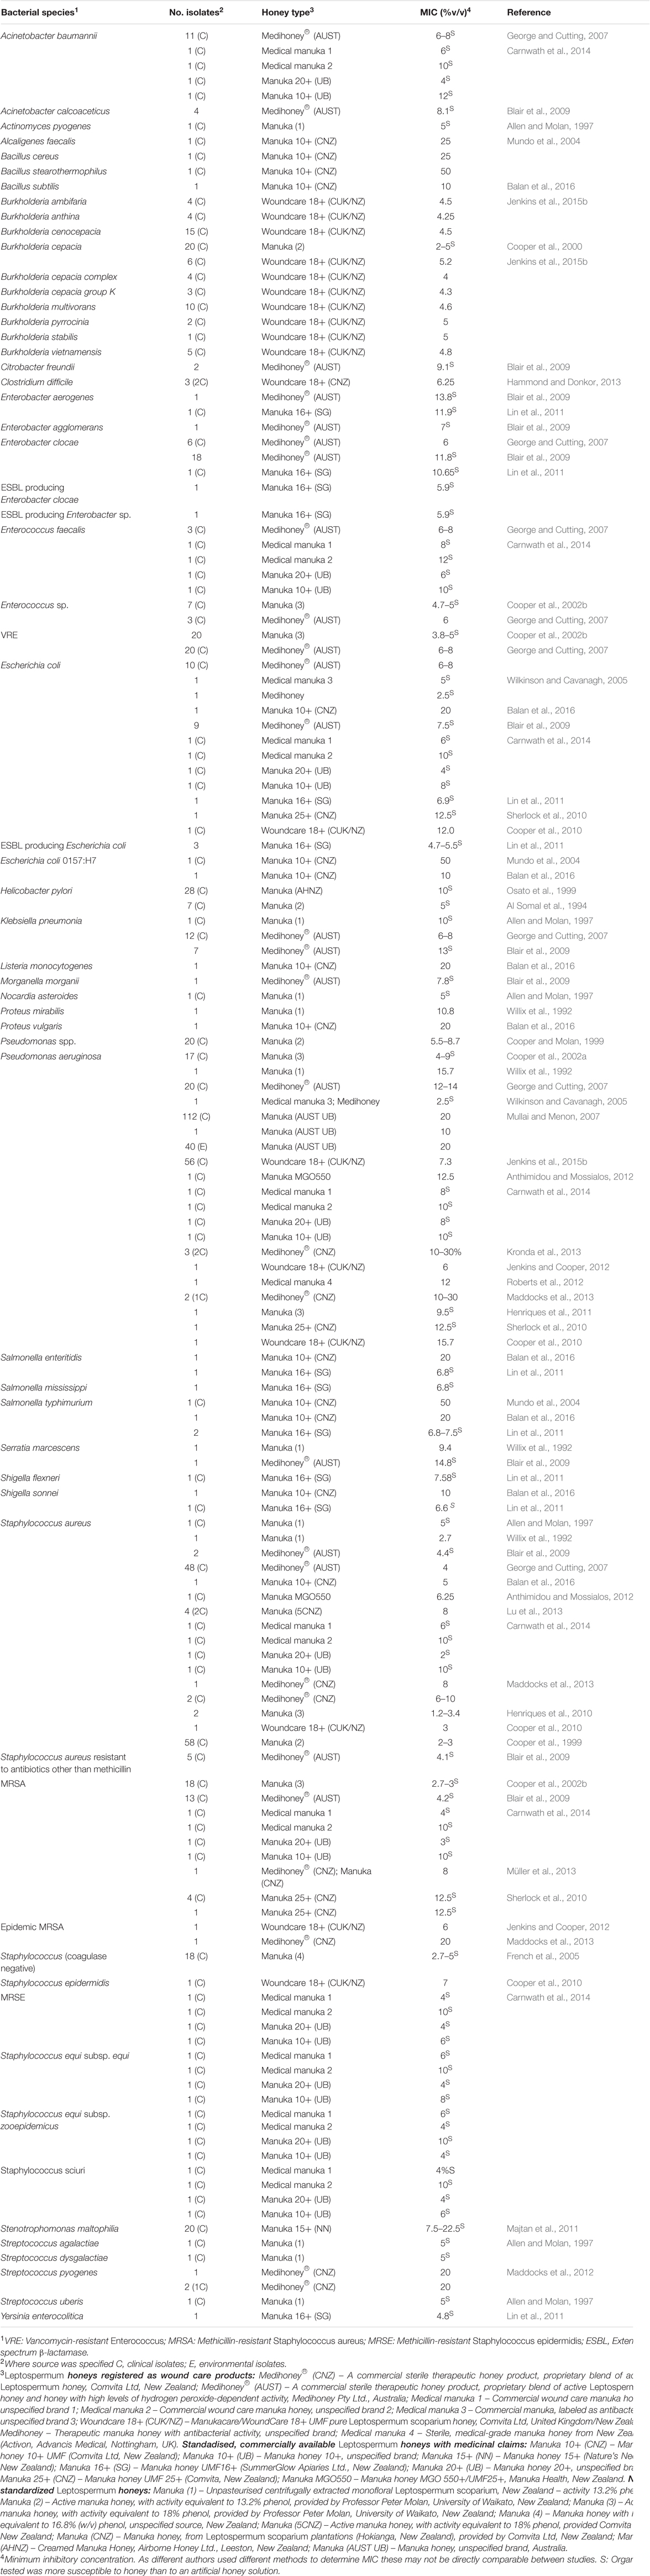
TABELA 1. Gatunki bakterii, w przypadku których stwierdzono wrażliwość na miód Manuka o działaniu terapeutycznym.
Oprócz hamowania komórek planktonowych miód może rozpraszać i zabijać bakterie żyjące w biofilmach. Biofilmy to zbiorowiska komórek, które zazwyczaj są otoczone wytwarzaną przez siebie macierzą zewnątrzkomórkową i przylegają do powierzchni, w tym ran, zębów, powierzchni błon śluzowych oraz wszczepionych urządzeń. Mikroorganizmy bytujące w biofilmach są chronione przed środkami przeciwdrobnoustrojowymi i mogą powodować uporczywe, niegojące się zakażenia. Miód Manuka zaburza skupiska komórek (Maddocks et al., 2012; Roberts et al., 2012) oraz zapobiega tworzeniu biofilmów przez szeroką gamę problematycznych patogenów, w tym gatunki z rodzajów Streptococcus i Staphylococcus, Pseudomonas aeruginosa, Escherichia coli, Proteus mirabilis, Enterobacter cloacae, Acinetobacter baumannii oraz Klebsiella pneumonia(Maddocks et al., 2012, 2013; Lu et al., 2014; Majtan et al., 2014a; Halstead et al., 2016). Co ważne, miód może również zaburzać już uformowane biofilmy i zabijać bytujące w nich komórki, choć wymaga to wyższego stężenia niż w przypadku komórek planktonowych (Okhiria et al., 2009; Maddocks et al., 2013; Lu et al., 2014; Majtan et al., 2014a). Bardzo niedawno miód Manuka przetestowano na wielogatunkowym biofilmie zawierającym Staphylococcus aureus, Streptococcus agalactiae, Pseudomonas aeruginosa oraz Enterococcus faecalis i stwierdzono, że zmniejszał żywotność wszystkich gatunków z wyjątkiem E. faecalis, którego nie można było wyeliminować (Sojka et al., 2016). Ma to wyraźne implikacje kliniczne dla stosowania miodu na ranach zawierających biofilmy, a zrozumienie, w jaki sposób biofilm umożliwia E. faecalis przetrwanie, mimo że bakteria ta jest zwykle zabijana przez miód, stanowi ważny i interesujący obszar przyszłych badań. MGO wydaje się odpowiadać za hamowanie biofilmów przez miód Manuka w dużej mierze, ale nie całkowicie, co ponownie podkreśla znaczenie dodatkowych składników modulujących jego działanie (Kilty et al., 2011; Lu et al., 2014).
Zakres działania miodu wobec patogenów niebakteryjnych nie został jeszcze dobrze ustalony. Najnowsze badania dotyczące przeciwwirusowego działania miodu Manuka sugerują, że może on mieć potencjał w leczeniu wirusa ospy wietrznej i półpaśca (przyczyny ospy wietrznej i półpaśca) (Shahzad and Cohrs, 2012) oraz grypy (Watanabe et al., 2014). Grzybicze patogeny skóry, w tym Candida albicans i gatunki dermatofitów, są znacznie mniej podatne na działanie miodu Manuka niż bakterie, ale ich wzrost jest hamowany przez miód o wysokim poziomie produkcji nadtlenku wodoru (Brady et al., 1996; Irish et al., 2006). Stwierdzono, że miód Manuka i miód inny niż Manuka zmniejszają żywotność zarodników mikrosporydii Nosema apis, ważnego patogenu pszczół, ale miód nie mógł wyleczyć zakażenia pszczół, gdy już się ono rozpoczęło (Malone et al., 2001). Przeprowadzono bardzo niewiele badań nad stosowaniem miodu przeciwko pasożytom pierwotniakowym lub robakom pasożytniczym, a w badaniach tych nie używano miodu o dobrze scharakteryzowanym działaniu, co utrudnia ocenę znaczenia ich wyników (Bassam et al., 1997; Nilforoushzadeh et al., 2007; Sajid and Azim, 2012).
Włączanie miodu do głównego nurtu medycyny: najnowsze badania eksperymentalne i mechanistyczne rzucają światło na działanie miodu
Aktywny miód Manuka jest powszechnie dostępny jako środek terapeutyczny i żywność funkcjonalna, a większość konsumentów postrzega go jako holistyczny, nieco tajemniczy produkt. Jednak brak wiedzy na temat tego, jak miód zabija bakterie i wspomaga gojenie, ogranicza jego akceptację przez medycynę głównego nurtu, w której nadal uważa się go za „alternatywny” lub „uzupełniający”. Zdecydowana większość dotychczasowych badań nad miodem miała charakter opisowy, jednak nowsze badania próbują wyjaśnić mechanizm działania miodu i wykorzystują podejścia mechanistyczne, aby określić jego wpływ na poziomie komórkowym i molekularnym.
Badania ultrastruktury komórek i społeczności bakteryjnych poddanych działaniu miodu
Miód może znacząco zmieniać rozmiar i kształt komórek bakteryjnych, chociaż zakres tych zmian różni się w zależności od gatunku bakterii. Obserwacje za pomocą transmisyjnej mikroskopii elektronowej (TEM) wykazały, że w hodowlach S. aureus traktowanych miodem Manuka było więcej komórek z ukończonymi przegrodami niż w hodowlach traktowanych miodem sztucznym, co sugeruje, że komórki rozpoczęły, lecz nie ukończyły etapu podziału cyklu komórkowego, chociaż zewnętrznie komórki te wyglądały normalnie w skaningowej mikroskopii elektronowej (SEM) (Henriques et al., 2010). Nowsze obrazowanie w kontraście fazowym po zastosowaniu subletalnej dawki miodu Manuka wykazało, że komórki S. aureus i Bacillus subtilis były znacząco mniejsze i częściej miały skondensowane DNA niż komórki rosnące bez miodu (Lu et al., 2013). Bezpośrednie porównanie tych badań jest trudne, ponieważ zastosowano w nich różne ilości miodu i różne czasy traktowania, jednak ogólnie wyniki sugerują rozdzielenie wzrostu i podziału komórki, często obserwowane w odpowiedzi na stresy związane z niedoborami składników odżywczych i warunkami środowiskowymi (Silva-Rocha and de Lorenzo, 2010).
Wykazano, że działanie miodu powoduje, iż hodowle gatunków Gram-ujemnych E. coli i P. aeruginosa zawierają zarówno nietypowo krótsze, jak i dłuższe komórki (Lu et al., 2013). Co ciekawe, chociaż P. aeruginosa wydaje się mniej podatna na hamujące działanie miodu niż inne gatunki, za pomocą TEM i SEM zaobserwowano znaczne zmiany komórkowe, w tym bruzdy i pęcherzyki (wypuklenia komórkowych błon plazmatycznych) na powierzchni komórek oraz dużą ilość pozakomórkowych pozostałości wskazujących na lizę komórek (Henriques et al., 2011). Potwierdzono to w kolejnym badaniu z użyciem fluorescencyjnego barwienia BacLight umożliwiającego rozróżnienie żywych i martwych komórek oraz mikroskopii konfokalnej, choć wykazano również, że pozostała stosunkowo duża liczba żywych komórek. W tych badaniach użyto miodu w stężeniu 20% (m/v), wyższym niż MBC dla zastosowanego szczepu P. aeruginosa, dlatego należało oczekiwać znacznego zahamowania wzrostu i obumierania komórek. Jednak mikroskopia sił atomowych (AFM), przeprowadzona przy użyciu poziomów subbakterycydalnych, również wykazała znaczne zniekształcenie komórek i tworzenie pęcherzyków w komórkach poddanych działaniu stężeń równych MIC (12%) i połowie MIC (6%), a także znaczną lizę komórek (Roberts et al., 2012). To widoczne zwyrodnienie komórek P. aeruginosa potwierdziła analiza ilościowa PCR, która wykazała 10-krotne obniżenie ekspresji genu oprF w komórkach poddanych działaniu miodu; gen ten koduje porynę błony zewnętrznej ważną dla stabilności strukturalnej (Jenkins et al., 2015a).
Analizy omiczne oceniają odpowiedź całej komórki na zahamowanie przez miód
Możliwość oceny produktów całej komórki zrewolucjonizowała badania nad interakcjami lek-patogen i ma szczególną wartość w przypadku złożonych produktów naturalnych, takich jak miód, których wpływ na wiele procesów jest prawdopodobny. Badania mikromacierzowe i proteomiczne bakterii eksponowanych na miód sugerowały indukcję procesów związanych ze stresem oraz zahamowanie syntezy białek (Blair et al., 2009; Jenkins et al., 2011; Packer et al., 2012). Chociaż ogólnie jest to dość typowe dla odpowiedzi na środki hamujące, miód wywoływał unikalny „podpis” różnicowej ekspresji, obejmujący wiele białek o hipotetycznych lub nieznanych funkcjach, co sugeruje nowy mechanizm działania. Konkretne geny lub białka, których ekspresja była zmniejszona w analizach „omicznych” S. aureus i E. coli O157/H7, pełnią funkcje związane z wirulencją, wyczuwaniem zagęszczenia populacji i tworzeniem biofilmu (Lee et al., 2011; Jenkins et al., 2013), natomiast u P. aeruginosa stwierdzono zmniejszenie ekspresji białek zaangażowanych w tworzenie wici (Roberts et al., 2015). Te cechy fenotypowe mają kluczowe znaczenie dla patogenów podczas kolonizacji i wywoływania inwazyjnego zakażenia oraz wskazują, że miód, oprócz hamowania wzrostu, może zmniejszać potencjał patogenny zakażających bakterii.
Chociaż przeprowadzone dotychczas analizy „omiczne” są nadal stosunkowo nieliczne i ograniczone pod względem zakresu, sugerują złożoną odpowiedź komórkową na miód, znacznie różniącą się w zależności od gatunku bakterii. Aby rozwikłać tę złożoność, potrzebne są obecnie zaawansowane metody biologii systemów, umożliwiające kontekstualizację danych, oraz badania walidacyjne z wykorzystaniem ilościowego PCR i szczepów z delecją genów. Mogą one ujawnić nowe podejścia do terapii lekowych ukierunkowanych na hamowanie wzrostu bakterii (Hudson et al., 2012).
Interakcje między miodem a konwencjonalnymi antybiotykami
Oprócz stosowania miodu jako jedynego środka istnieje możliwość wykorzystania go do uzupełnienia leczenia konwencjonalnymi antybiotykami. Może to mieć szczególną wartość w połączeniu z lekami ogólnoustrojowymi, które mogą być dostarczane do łożyska rany za pośrednictwem krążenia krwi, podczas gdy miód stosuje się miejscowo. Leczenie skojarzone może również zmniejszyć dawkę terapeutyczną środków przeciwdrobnoustrojowych i zapobiegać rozwojowi oporności, a w niektórych przypadkach może prowadzić do synergii leków, gdy łączne działanie jest większe niż suma indywidualnych działań każdego ze składników.
Badania in vitro łączące zatwierdzony do stosowania terapeutycznego miód Manuka z antybiotykami wykazały działanie synergistyczne oksacyliny, tetracykliny, imipenemu i mupirocyny przeciwko wzrostowi szczepu MRSA (Jenkins i Cooper, 2012). Ponadto obecność subinhibicyjnego stężenia miodu w połączeniu z oksacyliną przywracała szczepowi MRSA wrażliwość na oksacylinę. Autorzy stwierdzili obniżenie ekspresji mecR1, genu kodującego swoiste dla MRSA białko wiążące penicylinę (PBP2A), i zasugerowali, że może to być mechanizm synergii z miodem. Stwierdzono również silne działanie synergistyczne miodu Manuka i ryfampicyny przeciwko wielu szczepom S. aureus, w tym izolatom klinicznym i szczepom MRSA, a obecność miodu zapobiegała rozwojowi oporności na ryfampicynę in vitro (Müller i in., 2013). Ma to znaczenie kliniczne, ponieważ ryfampicyna dobrze przenika do tkanek i ropni oraz jest powszechnie stosowana w leczeniu powierzchownych zakażeń gronkowcowych, ale szybko indukuje oporność i dlatego musi być stosowana w połączeniu z innym środkiem. Dodatkowym wnioskiem z tego badania było to, że synergia nie wynikała z MGO, ponieważ syntetyczny miód z dodatkiem MGO nie wykazywał synergii z ryfampicyną.
Zrozumienie wpływu miodu na działanie środków przeciwdrobnoustrojowych o dobrze poznanych mechanizmach działania może również pogłębić naszą wiedzę o wpływie miodu na patogeny bakteryjne. Liu i in. (2014) rozszerzyli analizę synergii o dodatkowe antybiotyki oraz różne szczepy S. aureus i MRSA. Zasugerowali, że zwiększona wrażliwość na klindamycynę i gentamycynę może wynikać z połączonego efektu zahamowania syntezy białek przez miód oraz inhibicji rybosomów przez antybiotyki, podczas gdy synergia z antybiotykami β-laktamowymi może być związana ze zwiększonym stresem oksydacyjnym wywoływanym przez oba czynniki. Ponieważ szczepy S. aureus i MRSA były jednakowo wrażliwe na połączenie oksacyliny z miodem, wydawało się, że synergia prawdopodobnie nie wynika z obniżenia ekspresji PBP2A. Jednak w przypadku jednego klinicznego izolatu MRSA obecność miodu nie zwiększała wrażliwości na klindamycynę ani gentamycynę, co jest godne uwagi, ponieważ był to pierwszy opisany przypadek różnicy w odpowiedzi na miód między MRSA a S. aureus. Zbadanie tej różnicy zależnej od szczepu za pomocą analiz transkryptomicznych lub proteomicznych byłoby interesującym kierunkiem przyszłych badań (Liu i in., 2014).
Dowody skuteczności na podstawie badań na zwierzętach, opisów przypadków i badań klinicznych
Firmy produkujące i wprowadzające na rynek miód Manuka promują wysokie standardy etyczne i zniechęcają do stosowania modeli zwierzęcych w badaniach nad zakażeniami i gojeniem ran. Miód Manuka był jednak stosowany w leczeniu zwierząt z ranami pooperacyjnymi lub przypadkowymi, szczególnie koni, z pozytywnymi wynikami (Dart et al., 2015; Bischofberger et al., 2016). Opisy przypadków dotyczące stosowania miodu w trudno gojących się ranach i owrzodzeniach odnotowały znaczną poprawę oraz ustąpienie zakażenia w sytuacjach, gdy konwencjonalne antybiotyki zawiodły (Regulski, 2008; Smith et al., 2009). Jednak pomimo tego oraz dowodów z licznych modeli in vitro i in vivo, wskazujących, że miód zabija problematyczne patogeny ran, brakuje solidnych danych klinicznych dotyczących miodu Manuka. Wynika to z różnych przyczyn, w tym z trudności technicznych w przeprowadzeniu podwójnie ślepej, kontrolowanej placebo próby z użyciem tak charakterystycznej substancji jak miód, względów etycznych, braku zainteresowania ze strony praktyków klinicznych oraz niekorzystnego stosunku kosztów do korzyści dla firm miodowych, których działalność koncentruje się na produktach naturalnych i sprzedaży bez recepty, gdzie miód Manuka i powiązane z nim opatrunki już osiągają wysoką cenę. Sytuacja ta może się zmienić w miarę jak oporność na antybiotyki będzie ograniczać obecne możliwości leczenia, a trwające badania, podkreślające potencjał miodu, zwrócą na niego uwagę lekarzy.
Luki i nowe możliwości w badaniach nad miodem
W ostatnim czasie dokonał się znaczny postęp w naszym rozumieniu leczniczego działania miodu, jednak jego zastosowanie w medycynie klinicznej nadal pozostaje ograniczone, nawet gdy konwencjonalne antybiotyki zaczynają zawodzić. Złożoność miodu, będąca prawdopodobnie jego największą zaletą w zwalczaniu różnorodnych patogenów i zapobieganiu oporności, utrudnia jego badanie, ponieważ na działanie prawdopodobnie wpływa jednocześnie wiele czynników. Opowiadamy się za dalszymi badaniami mechanistycznymi z użyciem odpowiednio zarejestrowanego leczniczego miodu Manuka, w szczególności badaniami wykorzystującymi nieredukcjonistyczne podejścia z zakresu biologii systemów, wraz ze szczegółowymi analizami chemicznymi i mikrobiologicznymi, aby wyjaśnić, jak miód działa na poziomie molekularnym, komórkowym i populacyjnym, jak działanie to może różnić się w przypadku różnych szczepów i gatunków patogenów mikrobiologicznych oraz jak reaguje komórka gospodarza (Tabela 2). Informacje uzyskane w tych badaniach mogą następnie pomóc w opracowaniu terapii i dostarczyć danych klinicznych niezbędnych do włączenia miodu do głównego nurtu medycyny; tak aby nie był już terapią alternatywną stosowaną wyłącznie wtedy, gdy zawiodły wszystkie inne metody.
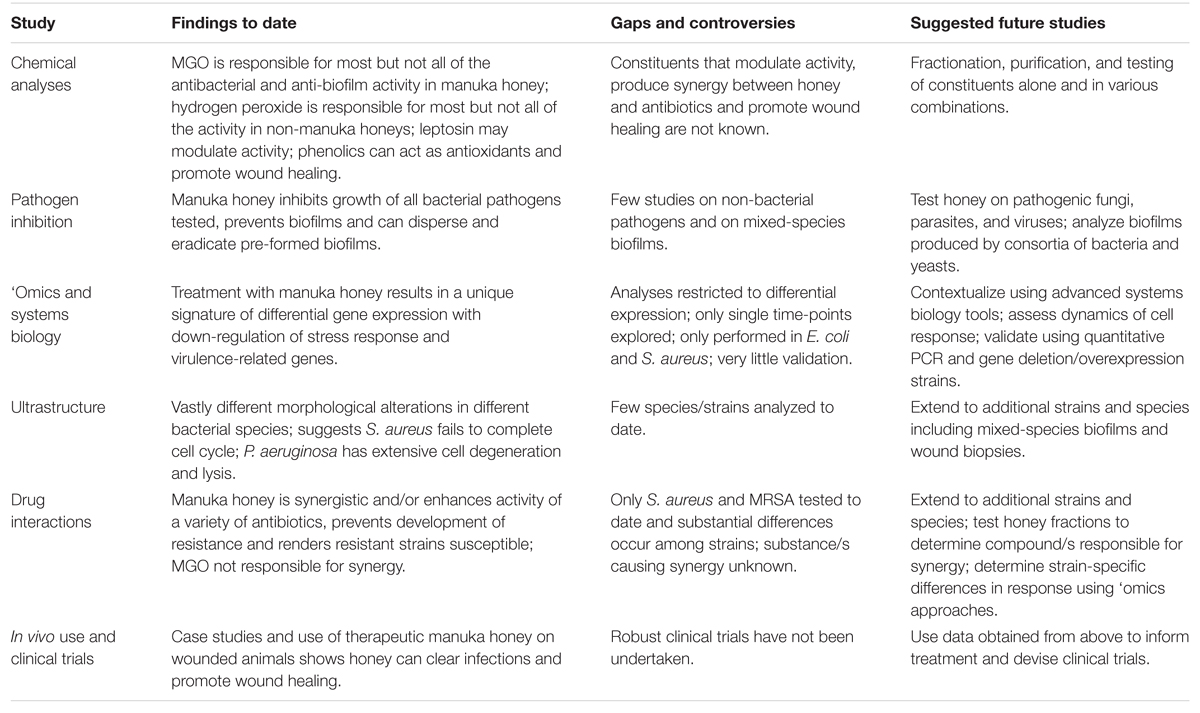
TABELA 2. Badania nad miodem Manuka: wyniki, luki i przyszłe badania.
Wkład autorów
Niniejszy przegląd został napisany przez DC, SB, NNC, DB i PB, a następnie poddany krytycznej ocenie przez RS i EH.
Finansowanie
NNC otrzymuje wsparcie wynagrodzeniowe od Rural Industries Research and Development Corporation – Honey Bee Program (grant PRJ-009186).
Oświadczenie dotyczące konfliktu interesów
DC, PB i EH zgłaszają wsparcie w postaci wynagrodzenia oraz niepieniężne wsparcie w formie miodu Manuka od firm Comvita NZ Limited i Capilano Honey Limited; RS jest zatrudniony przez Comvita NZ Limited, która prowadzi handel miodem Manuka o jakości medycznej (Medihoney).
Pozostali autorzy oświadczają, że badanie przeprowadzono bez jakichkolwiek powiązań komercyjnych lub finansowych, które można by uznać za potencjalny konflikt interesów.
Skróty
ESBL, β-laktamaza o rozszerzonym spektrum działania; MBC, minimalne stężenie bakteriobójcze; MGO, metyloglioksal; MIC, minimalne stężenie hamujące; MRSA, oporny na metycylinę Staphylococcus aureus; MRSE, oporny na metycylinę Staphylococcus epidermis; NPA, aktywność niezależna od nadtlenku; VRE, oporny na wankomycynę Enterococcus.
Piśmiennictwo
Adams, C. J., Boult, C. H., Deadman, B. J., Farr, J. M., Grainger, M. N. C., Manley-Harris, M. i in. (2008). Izolacja metodą HPLC i charakterystyka frakcji bioaktywnej nowozelandzkiego miodu Manuka (Leptospermum scoparium). Carbohydr. Res. 343, 651–659. doi: 10.1016/j.carres.2007.12.011
Adams, C. J., Manley-Harris, M. i Molan, P. C. (2009). Pochodzenie metyloglioksalu w nowozelandzkim miodzie Manuka (Leptospermum scoparium). Carbohydr. Res. 344, 1050–1053. doi: 10.1016/j.carres.2009.03.020
Al Somal, N., Coley, K. E., Molan, P. C. i Hancock, B. M. (1994). Wrażliwość Helicobacter pylori na aktywność przeciwbakteryjną miodu Manuka. J. R. Soc. Med. 87, 9–12.
Allen, K., Molan, P. i Reid, G. (1991). Badanie aktywności przeciwbakteryjnej wybranych miodów nowozelandzkich. J. Pharm. Pharmacol.43, 817–822. doi: 10.1111/j.2042-7158.1991.tb03186.x
Allen, K. L. i Molan, P. C. (1997). Wrażliwość bakterii wywołujących mastitis na działanie przeciwbakteryjne miodu. N. Z. J. Agric. Res. 40, 537–540. doi: 10.1080/00288233.1997.9513276
Anthimidou, E. i Mossialos, D. (2012). Działanie przeciwbakteryjne greckich i cypryjskich miodów wobec Staphylococcus aureus i Pseudomonas aeruginosa w porównaniu z miodem Manuka. J. Med. Food 16, 42–47. doi: 10.1089/jmf.2012.0042
Balan, P., Mal, G., Das, S. i Singh, H. (2016). Synergistyczne i addytywne działanie przeciwdrobnoustrojowe kurkuminy, miodu Manuka i białek serwatkowych. J. Food Biochem. doi: 10.1111/jfbc.12249
Bassam, Z., Zohra, B. I. i Saada, A.-A. (1997). Wpływ miodu na pasożyty Leishmania: badanie in vitro. Trop. Doctor27, 36–38.
Biglari, B., Moghaddam, A., Santos, K., Blaser, G., Büchler, A., Jansen, G. i in. (2013). Wieloośrodkowe prospektywne badanie obserwacyjne dotyczące profesjonalnej pielęgnacji ran z użyciem miodu (Medihoney). Int. Wound J. 10, 252–259. doi: 10.1111/j.1742-481X.2012.00970.x
Bischofberger, A., Dart, C., Horadagoda, N., Perkins, N., Jeffcott, L., Little, C. i in. (2016). Wpływ żelu z miodem Manuka na stężenia transformującego czynnika wzrostu β1 i β3, liczbę bakterii oraz histomorfologię zanieczyszczonych ran skóry kończyn dalszych u koni o pełnej grubości. Aust. Vet. J. 94, 27–34. doi: 10.1111/avj.12405
Blair, S., Cokcetin, N., Harry, E. i Carter, D. (2009). Niezwykła aktywność przeciwbakteryjna miodu z Leptospermum klasy medycznej: spektrum działania przeciwbakteryjnego, oporność i analiza transkryptomu. Eur. J. Clin. Microbiol. Infect. Dis. 28, 1199–1208. doi: 10.1007/s10096-009-0763-z
Blair, S. E. i Carter, D. A. (2005). Potencjalne zastosowanie miodu w leczeniu ran i zakażeń. J. Austral. Infect. Control 10, 24–31.
Brady, N., Molan, P. i Harfoot, C. (1996). Wrażliwość dermatofitów na działanie przeciwdrobnoustrojowe miodu Manuka i innych miodów. Pharm. Pharmacol. Commun. 2, 471–473.
Carnwath, R., Graham, E. M., Reynolds, K. i Pollock, P. J. (2014). Działanie przeciwdrobnoustrojowe miodu przeciwko powszechnie występującym bakteryjnym izolatom z ran u koni. Vet. J. 199, 110–114. doi: 10.1016/j.tvjl.2013.07.003
Chen, C., Campbell, L., Blair, S. E. i Carter, D. A. (2012). Wpływ obróbki cieplnej na właściwości przeciwdrobnoustrojowe miodu. Front. Microbiol. 3:265. doi: 10.3389/fmicb.2012.00265
Cooper, R., Jenkins, L., Henriques, A., Duggan, R. i Burton, N. (2010). Brak oporności bakterii na miód Manuka klasy medycznej. Eur. J. Clin. Microbiol. Infect. Dis. 29, 1237–1241. doi: 10.1007/s10096-010-0992-1
Cooper, R. A., Halas, E. i Molan, P. C. (2002a). Skuteczność miodu w hamowaniu szczepów Pseudomonas aeruginosa z zakażonych oparzeń. J. Burn Care Rehabil. 23, 366–370. doi: 10.1097/00004630-200211000-00002
Cooper, R. A. i Molan, P. C. (1999). Zastosowanie miodu jako środka antyseptycznego w leczeniu zakażenia Pseudomonas. J. Wound Care 8, 161–164. doi: 10.12968/jowc.1999.8.4.25867
Cooper, R. A., Molan, P. C. i Harding, K. G. (1999). Działanie przeciwbakteryjne miodu przeciwko szczepom Staphylococcus aureus z zakażonych ran. J. R. Soc. Med. 92, 283–285.
Cooper, R. A., Molan, P. C. i Harding, K. G. (2002b). Wrażliwość istotnych klinicznie Gram-dodatnich ziarniaków wyizolowanych z ran na miód. J. Appl. Microbiol. 93, 857–863. doi: 10.1046/j.1365-2672.2002.01761.x
Cooper, R. A., Wigley, P. i Burton, N. F. (2000). Wrażliwość wieloopornych szczepów Burkholderia cepacia na miód. Lett. Appl. Microbiol. 31, 20–24. doi: 10.1046/j.1472-765x.2000.00756.x
Dart, A., Bischofberger, A., Dart, C. i Jeffcott, L. (2015). Przegląd badań nad gojeniem ran u koni przez rychłozrost z zastosowaniem miodu Manuka: aktualne zalecenia i przyszłe zastosowania. Equine Vet. Educ. 27, 658–664. doi: 10.1111/eve.12379
Estevinho, L., Pereira, A. P., Moreira, L., Dias, L. G. i Pereira, E. (2008). Działanie przeciwutleniające i przeciwdrobnoustrojowe ekstraktów związków fenolowych z miodu z północno-wschodniej Portugalii. Food Chem. Toxicol. 46, 3774–3779. doi: 10.1016/j.fct.2008.09.062
French, V. M., Cooper, R. A. i Molan, P. C. (2005). Działanie przeciwbakteryjne miodu przeciwko gronkowcom koagulazo-ujemnym. J. Antimicrobial Chemother. 56, 228–231. doi: 10.1093/jac/dki193
George, N. M. i Cutting, K. F. (2007). Miód o działaniu przeciwbakteryjnym (Medihoney): in vitro działanie przeciwko izolatom klinicznym MRSA, VRE i innym wieloopornym organizmom Gram-ujemnym, w tym Pseudomonas aeruginosa. Wounds 19:231.
Halstead, F. D., Webber, M. A., Rauf, M., Burt, R., Dryden, M. i Oppenheim, B. A. (2016). In vitro działanie miodu modyfikowanego, miodów do zastosowań medycznych i przeciwdrobnoustrojowych opatrunków na izolaty bakterii klinicznych wytwarzające biofilm. J. Wound Care 25, 93–102. doi: 10.12968/jowc.2016.25.2.93
Hammond, E. N. i Donkor, E. S. (2013). Działanie przeciwbakteryjne miodu Manuka na Clostridium difficile. BMC Res. 6:188. doi: 10.1186/1756-0500-6-188
Henriques, A. F., Jenkins, R. E., Burton, N. F. i Cooper, R. A. (2010). Wpływ miodu Manuka na procesy wewnątrzkomórkowe Staphylococcus aureus. Eur. J. Clin. Microbiol. Infect. Dis. 29, 45–50. doi: 10.1007/s10096-009-0817-2
Henriques, A. F., Jenkins, R. E., Burton, N. F. i Cooper, R. A. (2011). Wpływ miodu Manuka na strukturę Pseudomonas aeruginosa. Eur. J. Clin. Microbiol. Infect. Dis. 30, 167–171. doi: 10.1007/s10096-010-1065-1
Hudson, N. J., Dalrymple, B. P. i Reverter, A. (2012). Poza analizą różnicowej ekspresji: poszukiwanie mutacji przyczynowych i cząsteczek efektorowych. BMC Genomics 13:356. doi: 10.1186/1471-2164-13-356
Irish, J., Blair, S. i Carter, D. (2011). Działanie przeciwbakteryjne miodu pozyskanego z australijskiej flory. PLoS ONE 6:e18229. doi: 10.1371/journal.pone.0018229
Irish, J., Carter, D. A., Shokohi, T. i Blair, S. E. (2006). Miód wykazuje działanie przeciwgrzybicze wobec gatunków z rodzaju Candida. Med. Mycol.44, 289–291. doi: 10.1080/13693780600931986
Jenkins, R., Burton, N. i Cooper, R. (2011). Wpływ miodu Manuka na ekspresję uniwersalnego białka stresu A u opornego na metycylinę Staphylococcus aureus. Int. J. Antimicrob. Agents 37, 373–376. doi: 10.1016/j.ijantimicag.2010.11.036
Jenkins, R., Burton, N. i Cooper, R. (2013). Analiza proteomiczna i genomiczna opornego na metycylinę Staphylococcus aureus (MRSA) poddanego działaniu miodu Manuka in vitro wykazała obniżenie poziomu markerów wirulencji. J. Antimicrobial Chemother. 69, 603–615. doi: 10.1093/jac/dkt430
Jenkins, R. i Cooper, R. (2012). Zwiększanie aktywności antybiotyków wobec patogenów ran za pomocą miodu Manuka in vitro. PLoS ONE 7:e45600. doi: 10.1371/journal.pone.0045600
Jenkins, R., Roberts, A. i Brown, H. L. (2015a). Wpływ przeciwbakteryjny miodu Manuka: wnioski mechanistyczne. Res. Rep. Biol. 6, 215–224. doi: 10.2147/RRB.S75754
Jenkins, R., Wootton, M., Howe, R. i Cooper, R. (2015b). Wykazanie wrażliwości izolatów klinicznych uzyskanych od pacjentów z mukowiscydozą na miód Manuka. Arch. Microbiol. 197, 597–601. doi: 10.1007/s00203-015-1091-6
Kalapos, M. P. (2008). Tandem wolnych rodników i metyloglioksalu. Chem. Biol. Interact. 171, 251–271. doi: 10.1016/j.cbi.2007.11.009
Kato, Y., Umeda, N., Maeda, A., Matsumoto, D., Kitamoto, N. i Kikuzaki, H. (2012). Identyfikacja nowego glikozydu, leptozyny, jako markera chemicznego miodu Manuka. J. Agric. Food Chem. 60, 3418–3423. doi: 10.1021/jf300068w
Kilty, S. J., Duval, M., Chan, F. T., Ferris, W. i Slinger, R. (2011). Metyloglioksal: (substancja aktywna miodu Manuka) aktywność in vitro wobec biofilmów bakteryjnych. Int. Forum Allergy Rhinol. 1, 348–350. doi: 10.1002/alr.20073
Kronda, J. M., Cooper, R. A. i Maddocks, S. E. (2013). Miód Manuka hamuje produkcję syderoforów u Pseudomonas aeruginosa. J. Appl. Microbiol. 115, 86–90. doi: 10.1111/jam.12222
Kwakman, P. H., te Velde, A. A., de Boer, L., Vandenbroucke-Grauls, C. M. i Zaat, S. A. (2011). Dwa główne miody lecznicze mają różne mechanizmy działania bakteriobójczego. PLoS ONE 6:e17709. doi: 10.1371/journal.pone.0017709
Lee, J.-H., Park, J.-H., Kim, J.-A., Neupane, G. P., Cho, M. H., Lee, C.-S. i in. (2011). Niskie stężenia miodu ograniczają tworzenie biofilmu, quorum sensing i wirulencję u Escherichia coli O157: H7. Biofouling 27, 1095–1104. doi: 10.1080/08927014.2011.633704
Lin, S. M., Molan, P. C. i Cursons, R. T. (2011). Kontrolowana in vitro wrażliwość patogenów przewodu pokarmowego na działanie przeciwbakteryjne miodu Manuka. Eur. J. Clin. Microbiol. Infect. Dis. 30, 569–574. doi: 10.1007/s10096-010-1121-x
Liu, M., Lu, J., Müller, P., Turnbull, L., Burke, C. M., Schlothauer, R. C. i in. (2014). Różnice w odpowiedzi Staphylococcus aureus na leczenie środkami przeciwdrobnoustrojowymi w połączeniu z miodem Manuka zależne od antybiotyku. Front. Microbiol. 5:779. doi: 10.3389/fmicb.2014.00779
Lu, J., Carter, D. A., Turnbull, L., Rosendale, D., Hedderley, D., Stephens, J. i in. (2013). Wpływ nowozelandzkich miodów kanuka, manuka i koniczynowego na dynamikę wzrostu bakterii i morfologię komórkową różni się w zależności od gatunku. PLoS ONE8:e55898. doi: 10.1371/journal.pone.0055898
Lu, J., Turnbull, L., Burke, C. M., Liu, M., Carter, D. A., Schlothauer, R. C. i in. (2014). Miody typu Manuka mogą eliminować biofilmy wytwarzane przez szczepy Staphylococcus aureus o różnych zdolnościach tworzenia biofilmów. PeerJ 2:e326. doi: 10.7717/peerj.326
Maddocks, S. E., Jenkins, R. E., Rowlands, R. S., Purdy, K. J. i Cooper, R. A. (2013). Miód Manuka hamuje adhezję i inwazję medycznie istotnych bakterii ran in vitro. Fut. Microbiol. 8, 1523–1536. doi: 10.2217/fmb.13.126
Maddocks, S. E., Lopez, M. S., Rowlands, R. S. i Cooper, R. A. (2012). Miód Manuka hamuje rozwój biofilmów Streptococcus pyogenes i powoduje zmniejszenie ekspresji dwóch białek wiążących fibronektynę. Microbiology 158, 781–790. doi: 10.1099/mic.0.053959-0
Majtan, J. (2014). Miód: immunomodulator w gojeniu ran. Wound Repair Regenerat. 22, 187–192. doi: 10.1111/wrr.12117
Majtan, J., Bohova, J., Horniackova, M., Klaudiny, J. i Majtan, V. (2014a). Działanie miodu przeciwko tworzeniu biofilmu przez patogeny ran Proteus mirabilis i Enterobacter cloacae. Phytother. Res. 28, 69–75. doi: 10.1002/ptr.4957
Majtan, J., Bohova, J., Prochazka, E. i Klaudiny, J. (2014b). Metyloglioksal może wpływać na gromadzenie się nadtlenku wodoru w miodzie Manuka poprzez hamowanie oksydazy glukozowej. J. Med. Food 17, 290–293. doi: 10.1089/jmf.2012.0201
Majtan, J., Klaudiny, J., Bohova, J., Kohutova, L., Dzurova, M., Sediva, M. i in. (2012). Modyfikacje istotnych białkowych składników pszczół miodnych wywołane przez metyloglioksal w miodzie Manuka: możliwe implikacje terapeutyczne. Fitoterapia 83, 671–677. doi: 10.1016/j.fitote.2012.02.002
Majtan, J., Majtanova, L., Bohova, J. i Majtan, V. (2011). Miód spadziowy jako silny środek przeciwbakteryjny w eliminacji wielolekoopornych izolatów Stenotrophomonas maltophilia od pacjentów chorych na raka. Phytother. Res. 25, 584–587. doi: 10.1002/ptr.3304
Malone, L. A., Gatehouse, H. S. i Tregidga, E. L. (2001). Wpływ czasu, temperatury i miodu na Nosema apis(Microsporidia: Nosematidae), pasożyta pszczoły miodnej, Apis mellifera (Hymenoptera: Apidae). J. Invertebrate Pathol. 77, 258–268. doi: 10.1006/jipa.2001.5028
Mavric, E., Wittmann, S., Barth, G. i Henle, T. (2008). Identyfikacja i oznaczenie ilościowe metyloglioksalu jako dominującego składnika antybakteryjnego miodów Manuka (Leptospermum scoparium) z Nowej Zelandii. Mol. Nutrit. Food Res. 52, 483–489. doi: 10.1002/mnfr.200700282
Molan, P. M. (2008). Wyjaśnienie, dlaczego poziom MGO w miodzie Manuka nie wykazuje działania antybakteryjnego. New Zealand Beekeeper 16, 11–13.
Mullai, V. i Menon, T. (2007). Działanie bakteriobójcze różnych rodzajów miodu wobec izolatów klinicznych i środowiskowych Pseudomonas aeruginosa. J. Alternat. Complement. Med. 13, 439–442. doi: 10.1089/acm.2007.6366
Müller, P., Alber, D. G., Turnbull, L., Schlothauer, R. C., Carter, D. A., Whitchurch, C. B. i in. (2013). Synergizm między Medihoney a ryfampicyną przeciwko opornemu na metycylinę szczepowi Staphylococcus aureus (MRSA). PLoS ONE 8:e57679. doi: 10.1371/journal.pone.0057679
Mundo, M. A., Padilla-Zakour, O. I. i Worobo, R. W. (2004). Hamowanie wzrostu patogenów przenoszonych przez żywność i organizmów powodujących jej psucie przez wybrane surowe miody. Int. J. Food Microbiol. 97, 1–8. doi: 10.1016/j.ijfoodmicro.2004.03.025
Nilforoushzadeh, M. A., Jaffary, F., Moradi, S., Derakhshan, R. i Haftbaradaran, E. (2007). Wpływ miejscowego stosowania miodu wraz z doogniskowym wstrzykiwaniem glukantymu w leczeniu leiszmaniozy skórnej. BMC Complement Altern. Med. 7:1. doi: 10.1186/1472-6882-7-1
Norton, A. M., McKenzie, L. N., Brooks, P. R. i Pappalardo, L. J. (2015). Oznaczanie ilościowe dihydroksyacetonu w australijskim nektarze Leptospermum metodą wysokosprawnej chromatografii cieczowej. J. Agric. Food Chem. 63, 6513–6517. doi: 10.1021/acs.jafc.5b01930
Okhiria, O., Henriques, A., Burton, N., Peters, A. i Cooper, R. (2009). Miód moduluje biofilmy Pseudomonas aeruginosa w sposób zależny od czasu i dawki. J. ApiProduct. ApiMedical Sci. 1, 6–10. doi: 10.3896/IBRA.4.01.1.03
Osato, M. S., Reddy, S. G. i Graham, D. Y. (1999). Osmotyczny wpływ miodu na wzrost i żywotność Helicobacter pylori. Dig. Dis. Sci. 44, 462–464. doi: 10.1023/A:1026676517213
Packer, J. M., Irish, J., Herbert, B. R., Hill, C., Padula, M., Blair, S. E. i in. (2012). Specyficzne, niezależne od nadtlenku działanie przeciwbakteryjne miodu Manuka na proteom Staphylococcus aureus. Int. J. Antimicrob. Agents 40, 43–50. doi: 10.1016/j.ijantimicag.2012.03.012
Regulski, M. (2008). Nowy opatrunek do leczenia ran w przypadku przewlekłych owrzodzeń nóg. Podiatry Manag. 27, 235–246.
Roberts, A. E., Maddocks, S. E. i Cooper, R. A. (2012). Miód Manuka działa bakteriobójczo przeciwko Pseudomonas aeruginosa i powoduje zróżnicowaną ekspresję oprF i algD. Microbiology 158, 3005–3013. doi: 10.1099/mic.0.062794-0
Roberts, A. E. L., Maddocks, S. E. i Cooper, R. A. (2015). Miód Manuka ogranicza ruchliwość Pseudomonas aeruginosa poprzez tłumienie ekspresji genów związanych z wiciami. J. Antimicrob. Chemother. 70, 716–725. doi: 10.1093/jac/dku448
Sajid, M. i Azim, M. K. (2012). Charakterystyka nicieniobójczej aktywności naturalnego miodu. J. Agric. Food Chem. 60, 7428–7434. doi: 10.1021/jf301653n
Shahzad, A. i Cohrs, R. J. (2012). In vitro działanie przeciwwirusowe miodu przeciwko wirusowi ospy wietrznej i półpaśca (VZV): badanie z zakresu medycyny translacyjnej dotyczące potencjalnego środka na półpasiec. Transl. Biomed. 3:2.
Sherlock, O., Dolan, A., Athman, R., Power, A., Gethin, G., Cowman, S. i in. (2010). Porównanie aktywności przeciwdrobnoustrojowej miodu Ulmo z Chile i miodu Manuka przeciwko opornym na metycylinę Staphylococcus aureus, Escherichia coli i Pseudomonas aeruginosa. BMC Complement Altern. Med. 10:47. doi: 10.1186/1472-6882-10-47
Silva-Rocha, R. i de Lorenzo, V. (2010). Szum i odporność w prokariotycznych sieciach regulacyjnych. Annu. Rev. Microbiol. 64, 257–275. doi: 10.1146/annurev.micro.091208.073229
Smith, T., Hanft, J. R. i Legel, K. (2009). Miód z rodzaju Leptospermum stosowany miejscowo w opornych na leczenie żylnych ranach nóg: wstępna seria przypadków. Adv. Skin Wound Care 22, 68–71. doi: 10.1097/01.ASW.0000345283.05532.9a
Soffer, A. (1976). Chihuahua i laetril, terapia chelatowa oraz miód z Boulder w Kolorado [editorial]. Arch. Intern. Med.136, 865–866. doi: 10.1001/archinte.136.8.865
Sojka, M., Valachova, I., Bucekova, M. i Majtan, J. (2016). Skuteczność miodu i pochodzącej od pszczół defensyny-1 przeciwko wielogatunkowemu biofilmowi rany. J. Med. Microbiol. doi: 10.1099/jmm.0.000227 [Epub przed publikacją].
Stephens, J. M., Schlothauer, R. C., Morris, B. D., Yang, D., Fearnley, L., Greenwood, D. R. i in. (2010). Związki fenolowe i metyloglioksal w niektórych nowozelandzkich miodach Manuka i kanuka. Food Chem. 120, 78–86. doi: 10.1016/j.foodchem.2009.09.074
Tan, H. T., Rahman, R. A., Gan, S. H., Halim, A. S., Hassan, S. A., Sulaiman, S. A. i in. (2009). Właściwości antybakteryjne malezyjskiego miodu tualang wobec drobnoustrojów powodujących zakażenia ran i jelit w porównaniu z miodem Manuka. BMC Complement Altern. Med. 9:34. doi: 10.1186/1472-6882-9-34
Watanabe, K., Rahmasari, R., Matsunaga, A., Haruyama, T. i Kobayashi, N. (2014). Działanie przeciwwirusowe miodu przeciw grypie in vitro: silna aktywność miodu Manuka. Arch. Med. Res. 45, 359–365. doi: 10.1016/j.arcmed.2014.05.006
Wilkinson, J. M. i Cavanagh, H. M. A. (2005). Działanie przeciwbakteryjne 13 miodów wobec Escherichia coli i Pseudomonas aeruginosa. J. Med. Food 8, 100–103. doi: 10.1089/jmf.2005.8.100
Williams, S., King, J., Revell, M., Manley-Harris, M., Balks, M., Janusch, F. i in. (2014). Regionalne, roczne i indywidualne różnice w zawartości dihydroksyacetonu w nektarze Manuka (Leptospermum scoparium) w Nowej Zelandii. J. Agric. Food Chem. 62, 10332–10340. doi: 10.1021/jf5045958
Willix, D. J., Molan, P. C. i Harfoot, C. G. (1992). Porównanie wrażliwości gatunków bakterii wywołujących zakażenia ran na działanie przeciwbakteryjne miodu Manuka i innych miodów. J. Appl. Bacteriol. 73, 388–394. doi: 10.1111/j.1365-2672.1992.tb04993.x
Windsor, S., Pappalardo, M., Brooks, P., Williams, S. i Manley-Harris, M. (2012). Wygodna nowa metoda analizy dihydroksyacetonu i metyloglioksalu zastosowana do australijskich miodów z gatunku Leptospermum. J. Pharmacogn. Phytother. 4, 6–11.
Źródło: Terapeutyczny miód Manuka: już nie tak alternatywny - https://www.frontiersin.org/articles/10.3389/fmicb.2016.00569/full
Zostaw komentarz