Miele di Manuka Terapeutico: Non Più Così Alternativo
La ricerca sul miele medicinale sta vivendo una significativa rinascita. Da rimedio tradizionale in gran parte liquidato dalla medicina convenzionale come «alternativo», oggi assistiamo a un crescente interesse da parte di scienziati, professionisti sanitari e pubblico generale per gli usi terapeutici del miele. Questo interesse è alimentato da diversi fattori: innanzitutto, l’aumento della resistenza agli antibiotici da parte di numerosi patogeni batterici ha stimolato l’interesse per lo sviluppo e l’impiego di nuovi antibatterici; in secondo luogo, un numero crescente di studi affidabili e casi clinici ha dimostrato che alcuni mieli sono trattamenti molto efficaci per le ferite; in terzo luogo, il miele terapeutico ha un prezzo premium e l’industria del miele sta promuovendo attivamente studi che le consentiranno di trarre vantaggio da questo interesse; infine, la natura estremamente complessa e piuttosto imprevedibile del miele rappresenta una sfida stimolante per gli scienziati di laboratorio. In questo articolo esaminiamo la ricerca sul miele di Manuka, dagli studi osservazionali sui suoi effetti antimicrobici fino agli attuali lavori sperimentali e meccanicistici, che mirano a portare il miele nella medicina convenzionale. Evidenziamo le attuali lacune e le controversie ancora aperte nella nostra conoscenza del modo in cui agisce il miele e proponiamo nuovi studi che potrebbero far sì che il miele non sia più un’alternativa «alternativa».
Introduzione
Il miele è stato utilizzato come medicinale per tutta la storia dell’umanità. Uno degli impieghi terapeutici più comuni e consolidati del miele è stato quello di medicazione per le ferite, quasi certamente grazie alle sue proprietà antimicrobiche. Con l’avvento degli antibiotici altamente efficaci negli anni ’60, il miele fu liquidato come una «sostanza inutile ma innocua» (Soffer, 1976). Tuttavia, l’attuale e crescente crisi della resistenza agli antibiotici ha riacceso l’interesse per l’uso del miele, sia come agente efficace di per sé, sia come punto di partenza terapeutico per sviluppare nuovi metodi di trattamento. Il miele deriva solitamente dal nettare dei fiori ed è prodotto dalle api, più comunemente dall’ape mellifera europea Apis mellifera; è una miscela complessa di zuccheri, amminoacidi, composti fenolici e altre sostanze. I tipi di miele derivati da piante fiorite diverse variano notevolmente nella loro capacità di uccidere i batteri, complicando la letteratura sul miele e rendendo talvolta difficile riprodurre i risultati tra studi diversi (Allen et al., 1991; Irish et al., 2011). La maggior parte degli studi recenti che indagano il meccanismo d’azione del miele si è concentrata sul miele di Manuka attivo, ben caratterizzato e standardizzato, prodotto da alcune specie di Leptospermum originarie della Nuova Zelanda e dell’Australia, che è stato registrato come prodotto per la cura delle ferite presso gli enti normativi sanitari competenti. Pertanto, salvo diversa indicazione, questa rassegna si concentrerà sul miele di Manuka.
Analisi chimiche del miele di Manuka attivo
Il professor Peter Molan dell’Università di Waikato, in Nuova Zelanda, fu il primo a riferire l’insolita attività del miele di Manuka e iniziò a testarne l’azione contro un’ampia gamma di specie batteriche diverse a metà degli anni ’80. Tuttavia, sebbene fosse evidente che anche basse concentrazioni di miele di Manuka uccidessero i patogeni batterici, per molti anni non fu possibile identificare lo specifico principio attivo responsabile. L’elevato contenuto di zuccheri e il basso pH rendono il miele inibitorio per la crescita microbica, ma l’attività persiste quando questi fattori vengono diluiti fino a livelli trascurabili. Anche molti diversi tipi di miele producono perossido di idrogeno quando la glucosio ossidasi, derivata dall’ape mellifera, reagisce con il glucosio e l’acqua. Tuttavia, nel miele di Manuka la produzione di perossido di idrogeno è relativamente bassa e può essere neutralizzata dalla catalasi, mentre l’attività persiste comunque. La causa di questa attività residua, definita “attività non legata al perossido” o NPA, fu finalmente rivelata nel 2008, quando due laboratori identificarono indipendentemente il metilgliossale (MGO) nel miele di Manuka (Adams et al., 2008; Mavric et al., 2008). L’MGO deriva dalla disidratazione spontanea del suo precursore diidrossiacetone (DHA), un fitochimico presente naturalmente nel nettare dei fiori di Leptospermum scoparium, Leptospermum polygalifolium e di alcune specie affini di Leptospermum originarie della Nuova Zelanda e dell’Australia (Adams et al., 2009; Williams et al., 2014; Norton et al., 2015). L’MGO può reagire in modo relativamente aspecifico con macromolecole come DNA, RNA e proteine (Adams et al., 2008; Mavric et al., 2008; Majtan et al., 2014b) e, in teoria, potrebbe essere tossico per le cellule dei mammiferi (Kalapos, 2008). Tuttavia, non vi sono prove di danni alle cellule dell’organismo quando il miele di Manuka viene consumato per via orale o utilizzato come medicazione per ferite; anzi, il miele sembra stimolare la guarigione e ridurre la formazione di cicatrici quando viene applicato sulle ferite (Biglari et al., 2013; Majtan, 2014; Dart et al., 2015). Non è noto come eserciti questa tossicità apparentemente selettiva sulle cellule batteriche.
Livelli elevati di MGO o di perossido di idrogeno producono solitamente il miele più attivo; tuttavia, la correlazione non è sempre perfetta, il che suggerisce che altri componenti del miele possano modulare l'attività (Molan, 2008; Kwakman et al., 2011; Chen et al., 2012; Lu et al., 2013). La defensina-1 delle api, un peptide antimicrobico di origine apistica, è responsabile dell'attività del miele Revamil, un miele attivo prodotto da una fonte non divulgata, ma nel miele di Manuka sembra essere strutturalmente modificata e inattiva (Kwakman et al., 2011; Majtan et al., 2012). Il livello di leptosina, un glicoside presente esclusivamente nel miele di Leptospermum, è correlato alla potenza e può modulare l'attività antimicrobica del miele di Manuka (Kato et al., 2012). Analogamente, possono essere presenti diversi composti fenolici con potenziale attività antimicrobica, in particolare nei mieli di colore più scuro; sebbene siano presenti a livelli che difficilmente risultano inibitori da soli, possono agire sinergicamente tra loro o con altri componenti del miele, producendo o modificando l'attività (Estevinho et al., 2008; Stephens et al., 2010). I composti fenolici possono anche agire come antiossidanti e potrebbero essere responsabili delle proprietà antinfiammatorie e cicatrizzanti del miele (Stephens et al., 2010). Va osservato che non tutte le specie di Leptospermum producono miele attivo e che, anche all'interno di L. scoparium e L. polygalifolium, i livelli di MGO possono variare da ∼100 a >1200 ppm (Windsor et al., 2012). Un'indagine sull'attività dei mieli australiani ha rilevato che il miele proveniente da piante di Leptospermum cresciute nei pressi del confine tra il Nuovo Galles del Sud e il Queensland era particolarmente attivo, ma non è noto se ciò dipenda dalla pianta, dal suolo, dal clima o da altri fattori (Irish et al., 2011).
L'inibizione dei patogeni da parte del miele
Il miele è stato testato in vitro su una vasta gamma di patogeni, in particolare quelli che possono colonizzare la pelle, le ferite e le mucose, dove è possibile un trattamento topico con il miele. Finora, i test in vitro hanno dimostrato che il miele di Manuka può inibire efficacemente tutti i patogeni batterici problematici testati (riassunti nella Tabella 1). È particolarmente interessante il fatto che gli isolati clinici con fenotipi di multiresistenza ai farmaci (MDR) non mostrino una riduzione della sensibilità al miele, indicando uno spettro d'azione ampio, diverso da quello di qualsiasi antimicrobico noto (Willix et al., 1992; Blair and Carter, 2005; George and Cutting, 2007; Tan et al., 2009). Inoltre, i tentativi di generare in laboratorio ceppi resistenti al miele non hanno avuto successo e non sono stati segnalati isolati clinici con resistenza acquisita al miele (Blair et al., 2009; Cooper et al., 2010).
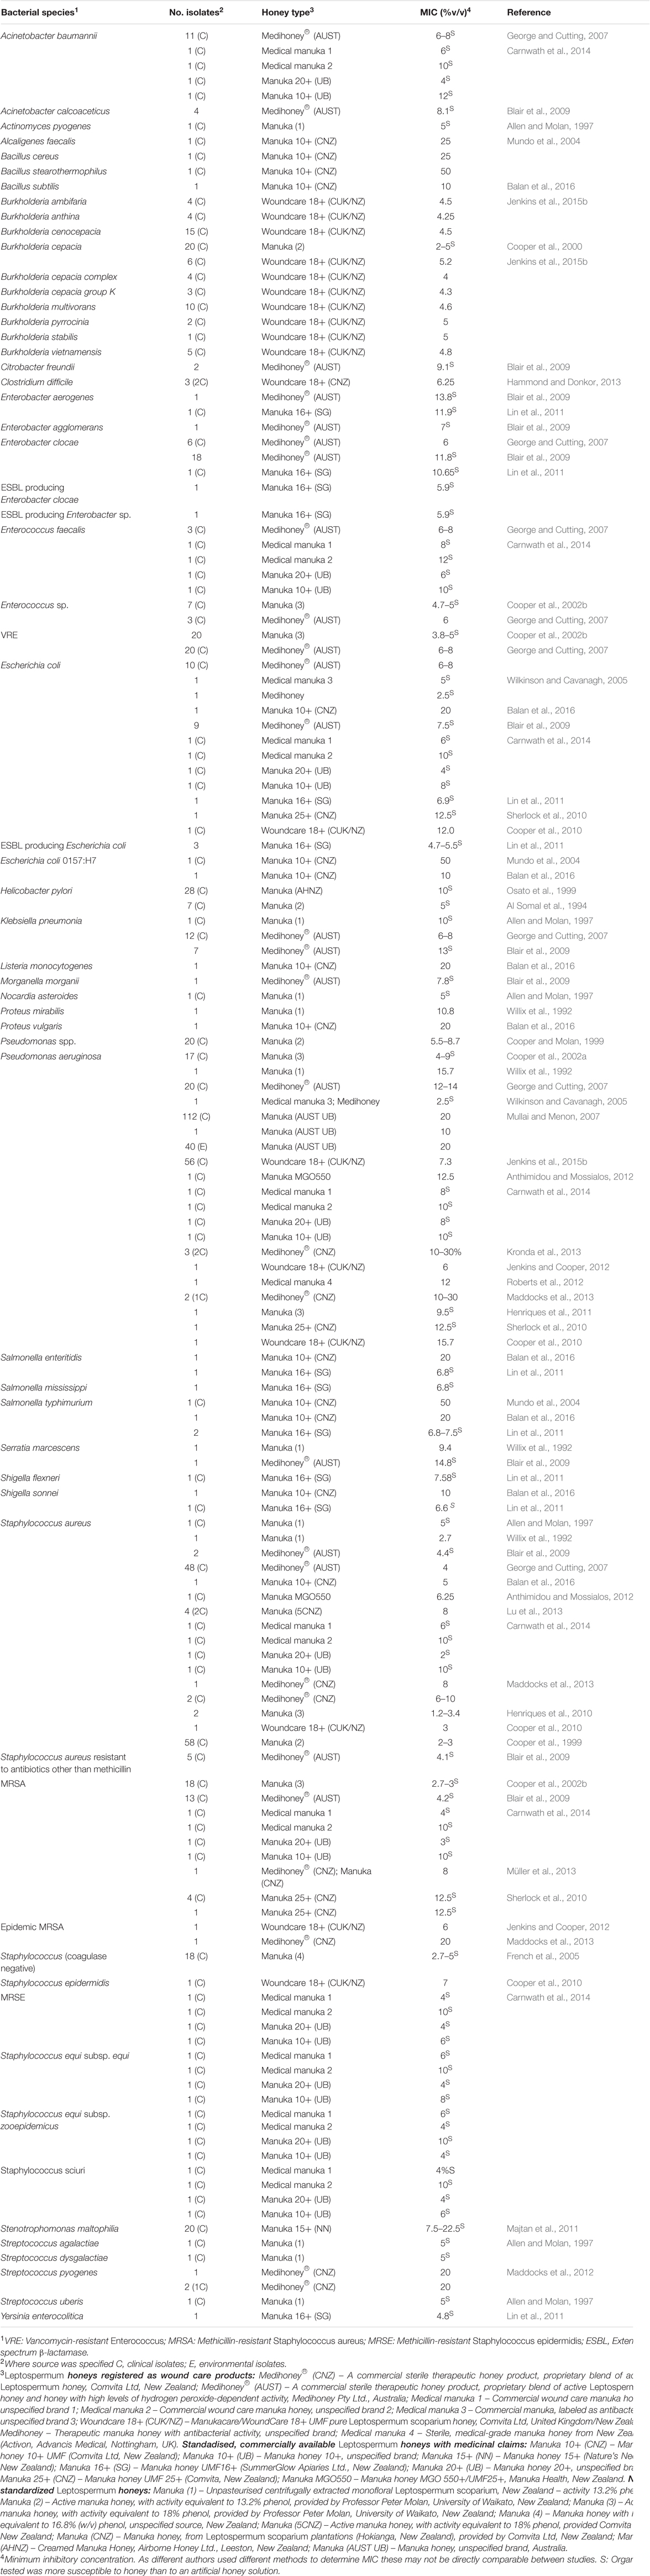
TABELLA 1. Specie batteriche risultate sensibili al miele di Manuka terapeutico.
Oltre a inibire le cellule planctoniche, il miele può disperdere e uccidere i batteri che vivono nei biofilm. I biofilm sono comunità di cellule generalmente racchiuse in una matrice extracellulare autoprodotta e presenti adese alle superfici, comprese ferite, denti, superfici mucose e dispositivi impiantati. I microrganismi presenti nei biofilm sono protetti dagli agenti antimicrobici e possono causare infezioni persistenti e non risolutive. Il miele di Manuka interrompe gli aggregati cellulari (Maddocks et al., 2012; Roberts et al., 2012) e previene la formazione di biofilm da parte di un'ampia gamma di patogeni problematici, comprese le specie di Streptococcus e Staphylococcus, Pseudomonas aeruginosa, Escherichia coli, Proteus mirabilis, Enterobacter cloacae, Acinetobacter baumannii e Klebsiella pneumonia(Maddocks et al., 2012, 2013; Lu et al., 2014; Majtan et al., 2014a; Halstead et al., 2016). È importante sottolineare che il miele può anche interrompere i biofilm già formati e uccidere le cellule residenti, sebbene sia necessaria una concentrazione maggiore rispetto a quella richiesta per le cellule planctoniche (Okhiria et al., 2009; Maddocks et al., 2013; Lu et al., 2014; Majtan et al., 2014a). Recentissimamente, il miele di Manuka è stato testato su un biofilm multispecie contenente Staphylococcus aureus, Streptococcus agalactiae, Pseudomonas aeruginosa ed Enterococcus faecalis ed è risultato in grado di ridurre la vitalità di tutte le specie tranne E. faecalis, che non ha potuto essere eradicato (Sojka et al., 2016). Ciò ha chiare implicazioni cliniche per l'uso del miele sulle ferite contenenti biofilm, e comprendere in che modo il biofilm consenta a E. faecalis di sopravvivere quando normalmente viene ucciso dal miele rappresenta un'importante e interessante area di studio futuro. MGO sembra essere in gran parte, ma non completamente, responsabile dell'inibizione dei biofilm da parte del miele di Manuka, evidenziando ancora una volta l'importanza di componenti aggiuntivi che ne modulano l'attività (Kilty et al., 2011; Lu et al., 2014).
Lo spettro d’azione del miele nei confronti dei patogeni non batterici non è ancora ben definito. Recenti studi sull’effetto antivirale del miele di Manuka hanno suggerito un potenziale nel trattamento del virus varicella-zoster (la causa della varicella e dell’herpes zoster) (Shahzad and Cohrs, 2012) e dell’influenza (Watanabe et al., 2014). I patogeni fungini della pelle, tra cui Candida albicans e le specie di dermatofiti, sono sostanzialmente meno sensibili dei batteri al miele di Manuka, ma vengono inibiti dal miele con elevati livelli di produzione di perossido di idrogeno (Brady et al., 1996); Irish et al., 2006). È stato riscontrato che il miele di Manuka e il miele non di Manuka riducono la vitalità delle spore del microsporidio Nosema apis, un importante patogeno delle api, ma il miele non è riuscito a curare l’infezione nelle api una volta che questa era in corso (Malone et al., 2001). Sono stati condotti pochissimi studi sull’uso del miele contro i parassiti protozoi o gli elminti, e questi non hanno utilizzato miele con un’attività ben caratterizzata, rendendo difficile valutare l’importanza dei loro risultati (Bassam et al., 1997); Nilforoushzadeh et al., 2007); Sajid and Azim, 2012).
Portare il miele nella medicina tradizionale: recenti studi sperimentali e meccanicistici fanno luce sul funzionamento del miele
Il miele attivo di Manuka è ampiamente disponibile come agente terapeutico e alimento funzionale, e la maggior parte dei consumatori lo considera un prodotto olistico e in qualche modo misterioso. Tuttavia, la scarsa comprensione di come il miele uccida i batteri e favorisca la guarigione ne limita l’accettazione da parte della medicina tradizionale, dove è ancora considerato “alternativo” o “complementare”. La stragrande maggioranza degli studi sul miele condotti finora è stata descrittiva; tuttavia, studi recenti stanno cercando di chiarire il funzionamento del miele e adottano approcci meccanicistici per determinare come agisca a livello cellulare e molecolare.
Studi ultrastrutturali delle cellule e delle comunità batteriche trattate con il miele
Il miele può alterare profondamente le dimensioni e la forma delle cellule batteriche, sebbene l’entità di questo effetto vari a seconda della specie batterica. Utilizzando la microscopia elettronica a trasmissione (TEM), nelle colture di S. aureus trattate con miele di Manuka si osservava un numero maggiore di cellule con setti completati rispetto a quelle trattate con miele artificiale, suggerendo che le cellule entrassero nella fase di divisione ma non riuscissero a completarla, sebbene dall’esterno queste cellule apparissero normali alla microscopia elettronica a scansione (SEM) (Henriques et al., 2010). Più recentemente, l’imaging in contrasto di fase dopo il trattamento con una dose subletale di miele di Manuka ha evidenziato che le cellule di S. aureus e Bacillus subtilis erano significativamente più piccole e avevano una maggiore probabilità di presentare DNA condensato rispetto a quelle cresciute senza miele (Lu et al., 2013). È difficile confrontare direttamente questi studi, poiché utilizzavano quantità di miele e tempi di trattamento diversi, ma nel complesso i risultati suggeriscono un disaccoppiamento tra crescita e divisione cellulare, spesso osservato in risposta a stress nutrizionali e ambientali (Silva-Rocha and de Lorenzo, 2010).
È stato riferito che il trattamento con miele induce le colture delle specie Gram-negative E. coli e P. aeruginosa ad avere cellule sia anormalmente più corte sia più lunghe (Lu et al., 2013). È interessante notare che, sebbene P. aeruginosa sembri essere meno sensibile all’inibizione da parte del miele rispetto ad altre specie, mediante TEM e SEM sono stati osservati profondi cambiamenti cellulari, tra cui solchi e blebs (protrusioni delle membrane plasmatiche cellulari) sulla superficie cellulare e una notevole quantità di detriti extracellulari indicativi della lisi cellulare (Henriques et al., 2011). Ciò è stato verificato in uno studio successivo mediante colorazione a fluorescenza BacLight live-dead e microscopia confocale, sebbene quest’ultimo studio abbia anche dimostrato che rimaneva un numero relativamente elevato di cellule vive. Questi studi hanno utilizzato miele al 20% (p/v), una concentrazione superiore alla MBC per il loro ceppo di P. aeruginosa, per cui ci si sarebbe aspettati un’inibizione e una morte considerevoli. Tuttavia, la microscopia a forza atomica (AFM), utilizzando livelli sub-battericidi, ha comunque rilevato una considerevole distorsione cellulare e la formazione di blebs nelle cellule trattate con concentrazioni pari alla MIC (12%) e alla metà della MIC (6%), oltre a una notevole lisi cellulare (Roberts et al., 2012). Questa apparente degenerazione della cellula di P. aeruginosa è stata supportata dall’analisi quantitativa mediante PCR, che ha mostrato nelle cellule trattate con miele una riduzione di 10 volte dell’espressione di oprF, che codifica una porina della membrana esterna importante per la stabilità strutturale (Jenkins et al., 2015a).
Le analisi “omics” valutano la risposta dell’intera cellula all’inibizione da parte del miele
La capacità di valutare gli esiti a livello dell’intera cellula ha rivoluzionato lo studio delle interazioni tra farmaci e patogeni e ha particolare valore per prodotti naturali complessi come il miele, per i quali sono probabili effetti su molteplici processi. Gli studi mediante microarray e proteomica condotti su batteri esposti al miele hanno suggerito l’induzione di processi correlati allo stress e la soppressione della sintesi proteica (Blair et al., 2009; Jenkins et al., 2011; Packer et al., 2012). Sebbene nel complesso ciò sia abbastanza tipico di una risposta ad agenti inibitori, il miele ha prodotto una «firma» unica di espressione differenziale, che includeva molte proteine con funzioni ipotetiche o sconosciute, suggerendo un nuovo meccanismo d’azione. Geni o proteine specifici risultati sottoregolati nelle analisi «omiche» di S. aureus e E. coli O157/H7 hanno funzioni correlate alla virulenza, al quorum sensing e alla formazione di biofilm (Lee et al., 2011; Jenkins et al., 2013), mentre in P. aeruginosa si è osservata una sottoregolazione delle proteine coinvolte nella formazione dei flagelli (Roberts et al., 2015). Questi fenotipi sono fondamentali affinché i patogeni si stabiliscano e producano un’infezione invasiva e indicano che, oltre a inibire la crescita, il miele può ridurre il potenziale patogeno dei batteri infettanti.
Sebbene siano ancora relativamente limitate per numero e portata, le analisi «omiche» condotte finora suggeriscono una risposta cellulare complessa al miele, con notevoli variazioni tra le diverse specie batteriche. Sono ora necessari approcci avanzati di biologia dei sistemi che consentano di contestualizzare i dati, nonché studi di validazione mediante PCR quantitativa e ceppi con delezione genica, per svelare questa complessità; tali studi potrebbero rivelare nuovi approcci terapeutici farmacologici mirati a inibire la crescita batterica (Hudson et al., 2012).
Interazioni tra miele e antibiotici convenzionali
Oltre all’uso come unico agente, vi è la possibilità di utilizzare il miele per potenziare il trattamento con antibiotici convenzionali. Ciò può avere particolare valore se combinato con agenti sistemici che possono essere trasportati al letto della ferita attraverso la circolazione sanguigna mentre il miele viene applicato topicamente. I trattamenti combinati possono inoltre ridurre la dose terapeutica degli agenti antimicrobici e prevenire lo sviluppo di resistenze e, in alcuni casi, possono determinare una sinergia farmacologica, in cui l’attività combinata è maggiore della somma delle attività individuali di ciascun farmaco.
Studi in vitro che combinavano miele di Manuka approvato per uso terapeutico con agenti antibiotici hanno rilevato un effetto sinergico con oxacillina, tetraciclina, imipenem e mupirocina contro la crescita di un ceppo di MRSA (Jenkins and Cooper, 2012). Inoltre, la presenza di una concentrazione sub-inibitoria di miele in combinazione con oxacillina ha ripristinato la sensibilità del ceppo di MRSA all'oxacillina. Gli autori hanno rilevato una riduzione dell'espressione di mecR1, che codifica una proteina legante la penicillina specifica dell'MRSA (PBP2A), e hanno suggerito che questo fosse un meccanismo della sinergia del miele. È stata inoltre riscontrata una forte attività sinergica tra il miele di Manuka e la rifampicina contro diversi ceppi di S. aureus, inclusi isolati clinici e ceppi di MRSA; la presenza di miele ha impedito lo sviluppo di resistenza alla rifampicina in vitro (Müller et al., 2013). Ciò ha rilevanza clinica, poiché la rifampicina penetra bene nei tessuti e negli ascessi ed è comunemente utilizzata per trattare le infezioni stafilococciche superficiali, ma induce rapidamente resistenza e deve quindi essere usata in combinazione con un altro agente. Un'ulteriore osservazione emersa da questo studio è stata che la sinergia non era dovuta a MGO, poiché un miele sintetico addizionato con MGO non mostrava sinergia con la rifampicina.
Comprendere in che modo il miele influisce sull'azione degli antimicrobici con meccanismi d'azione ben caratterizzati può inoltre aiutarci a capire meglio come il miele agisce sui patogeni batterici. Liu et al. (2014) hanno esteso l'analisi della sinergia includendo ulteriori antibiotici e diversi ceppi di S. aureus e MRSA. Hanno suggerito che una maggiore sensibilità a clindamicina e gentamicina potrebbe derivare dall'effetto combinato della riduzione della sintesi proteica da parte del miele e dell'inibizione dei ribosomi da parte degli antibiotici, mentre la sinergia con gli antibiotici β-lattamici potrebbe essere dovuta all'aumento dello stress ossidativo causato da entrambi i componenti. Poiché i ceppi di S. aureus e MRSA erano ugualmente sensibili alla combinazione di oxacillina e miele, sembrava improbabile che la sinergia fosse dovuta alla riduzione dell'espressione di PBP2A. Tuttavia, in un isolato clinico di MRSA non si è osservato alcun aumento della sensibilità a clindamicina o gentamicina in presenza di miele; ciò è degno di nota, poiché si tratta del primo caso riportato di una differenza nella risposta al miele tra MRSA e S. aureus. Studiare questa differenza specifica del ceppo mediante analisi trascrittomiche o proteomiche sarebbe un'interessante direzione per la ricerca futura (Liu et al., 2014).
Prove di efficacia da studi sugli animali, casi clinici e studi clinici
Le aziende che producono e commercializzano miele di Manuka promuovono elevati standard etici e scoraggiano l'uso di modelli animali per studiare le infezioni e la guarigione delle ferite. Tuttavia, il miele di Manuka è stato utilizzato per trattare animali con ferite chirurgiche o accidentali, in particolare cavalli, con esiti positivi (Dart et al., 2015; Bischofberger et al., 2016). Case report sull'uso del miele per ferite e ulcere non cicatrizzanti hanno rilevato un miglioramento significativo, con risoluzione dell'infezione nei casi in cui gli antibiotici convenzionali avevano fallito (Regulski, 2008; Smith et al., 2009). Tuttavia, nonostante ciò e le evidenze provenienti da numerosi modelli in vitro e in vivo che dimostrano come il miele elimini i patogeni problematici delle ferite, i dati clinici solidi sul miele di Manuka sono scarsi. Le ragioni sono diverse, tra cui le difficoltà tecniche nell'esecuzione di uno studio in doppio cieco controllato con placebo su una sostanza particolare come il miele, considerazioni etiche, lo scarso interesse da parte dei medici e il rapporto costi-benefici per le aziende del miele, il cui interesse è rivolto ai prodotti naturali e alle vendite da banco, ambiti nei quali il miele di Manuka e le medicazioni correlate hanno già un prezzo premium. Questi fattori potrebbero cambiare man mano che la resistenza agli antibiotici riduce le attuali opzioni terapeutiche e la ricerca in corso, che evidenzia il potenziale del miele, lo porta all'attenzione dei professionisti sanitari.
Lacune e nuove opportunità nello studio del miele
Recentemente sono stati compiuti grandi progressi nella comprensione del miele terapeutico, tuttavia il suo impiego nella medicina clinica rimane limitato, anche quando gli antibiotici convenzionali stanno iniziando a fallire. La complessità del miele, che è probabilmente il suo principale punto di forza nell'eliminare patogeni diversi e prevenire la resistenza, ne complica lo studio, poiché è probabile che molti fattori che agiscono insieme ne influenzino l'attività. Sosteniamo la necessità di ulteriori studi meccanicistici che utilizzino miele terapeutico di Manuka adeguatamente registrato, in particolare studi che adottino approcci di biologia dei sistemi non riduzionistici, insieme ad analisi chimiche e microbiologiche dettagliate, per chiarire come il miele agisca a livello molecolare, cellulare e di popolazione, come ciò possa differire tra diversi ceppi e specie di patogeni microbici e come risponda la cellula ospite (Tabella 2). Le informazioni ottenute da questi studi possono quindi orientare la terapia e fornire i dati clinici necessari per introdurre il miele nella medicina convenzionale, non più come terapia alternativa utilizzata solo quando ogni altra opzione ha fallito.
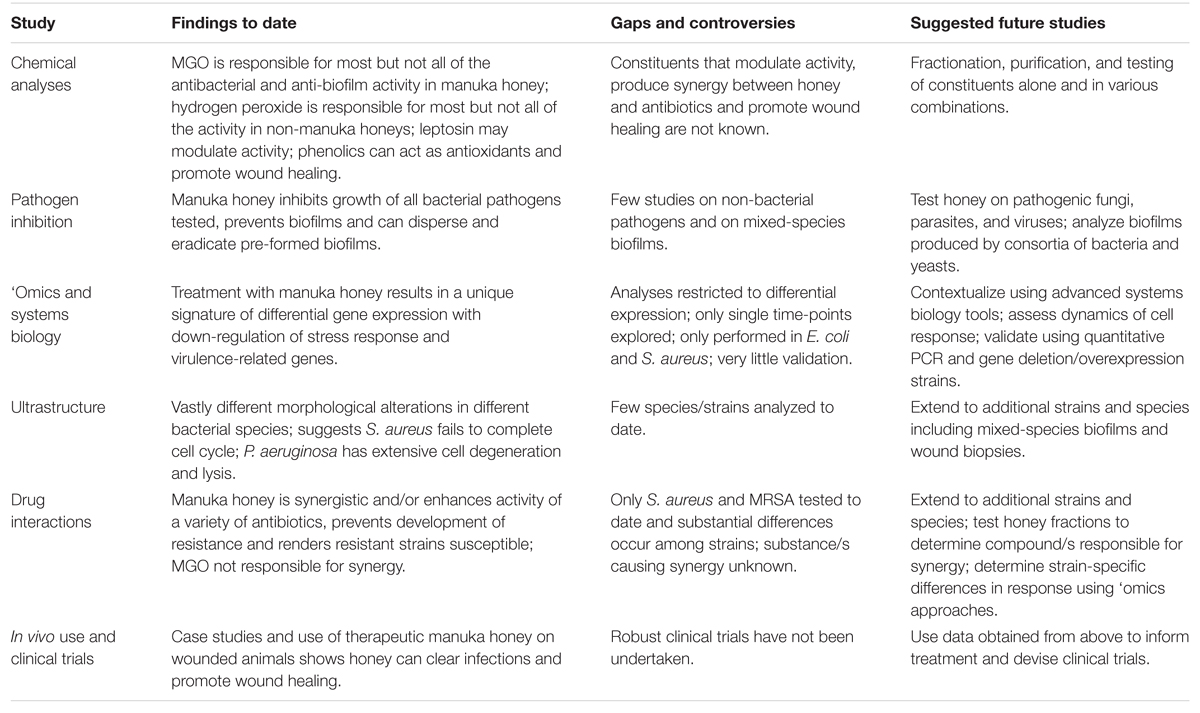
TABELLA 2. Studi sul miele di Manuka: risultati, lacune e studi futuri.
Contributi degli autori
Questa revisione è stata redatta da DC, SB, NNC, DB e PB e sottoposta a revisione critica da RS ed EH.
Finanziamento
NNC riceve un sostegno salariale dalla Rural Industries Research and Development Corporation – Honey Bee Program (sovvenzione PRJ-009186).
Dichiarazione sul conflitto di interessi
DC, PB ed EH dichiarano di ricevere da Comvita NZ Limited e Capilano Honey Limited un sostegno sotto forma di sovvenzioni e supporto non finanziario consistente in miele di Manuka; RS è dipendente di Comvita NZ Limited, che commercializza miele di Manuka di grado medicale (Medihoney).
Gli altri autori dichiarano che la ricerca è stata condotta in assenza di rapporti commerciali o finanziari che potessero essere interpretati come un potenziale conflitto di interessi.
Abbreviazioni
ESBL, β-lattamasi a spettro esteso; MBC, concentrazione battericida minima; MGO, metilgliossale; MIC, concentrazione minima inibente; MRSA, Staphylococcus aureus resistente alla meticillina; MRSE, Staphylococcus epidermis resistente alla meticillina; NPA, attività non derivante dal perossido; VRE, Enterococcus resistente alla vancomicina.
Riferimenti
Adams, C. J., Boult, C. H., Deadman, B. J., Farr, J. M., Grainger, M. N. C., Manley-Harris, M. e altri (2008). Isolamento mediante HPLC e caratterizzazione della frazione bioattiva del miele di Manuka neozelandese (Leptospermum scoparium). Carbohydr. Res. 343, 651–659. doi: 10.1016/j.carres.2007.12.011
Adams, C. J., Manley-Harris, M. e Molan, P. C. (2009). L’origine del metilgliossale nel miele di Manuka neozelandese (Leptospermum scoparium). Carbohydr. Res. 344, 1050–1053. doi: 10.1016/j.carres.2009.03.020
Al Somal, N., Coley, K. E., Molan, P. C. e Hancock, B. M. (1994). Suscettibilità di Helicobacter pylori all’attività antibatterica del miele di Manuka. J. R. Soc. Med. 87, 9–12.
Allen, K., Molan, P. e Reid, G. (1991). Indagine sull’attività antibatterica di alcuni mieli neozelandesi. J. Pharm. Pharmacol.43, 817–822. doi: 10.1111/j.2042-7158.1991.tb03186.x
Allen, K. L. e Molan, P. C. (1997). La sensibilità dei batteri che causano la mastite all'attività antibatterica del miele. N. Z. J. Agric. Res. 40, 537–540. doi: 10.1080/00288233.1997.9513276
Anthimidou, E. e Mossialos, D. (2012). Attività antibatterica dei mieli greci e ciprioti contro Staphylococcus aureus e Pseudomonas aeruginosa rispetto al miele Manuka. J. Med. Food 16, 42–47. doi: 10.1089/jmf.2012.0042
Balan, P., Mal, G., Das, S. e Singh, H. (2016). Attività antimicrobiche sinergiche e additive della curcumina, del miele Manuka e delle proteine del siero del latte. J. Food Biochem. doi: 10.1111/jfbc.12249
Bassam, Z., Zohra, B. I. e Saada, A.-A. (1997). Gli effetti del miele sui parassiti della Leishmania: uno studio in vitro. Trop. Doctor27, 36–38.
Biglari, B., Moghaddam, A., Santos, K., Blaser, G., Büchler, A., Jansen, G., et al. (2013). Studio osservazionale prospettico multicentrico sulla cura professionale delle ferite mediante miele (Medihoney). Int. Wound J. 10, 252–259. doi: 10.1111/j.1742-481X.2012.00970.x
Bischofberger, A., Dart, C., Horadagoda, N., Perkins, N., Jeffcott, L., Little, C., et al. (2016). Effetto del gel di miele Manuka sulle concentrazioni dei fattori di crescita trasformanti β1 e β3, sulla conta batterica e sull'istomorfologia di ferite cutanee contaminate a tutto spessore negli arti distali degli equini. Aust. Vet. J. 94, 27–34. doi: 10.1111/avj.12405
Blair, S., Cokcetin, N., Harry, E. e Carter, D. (2009). La peculiare attività antibatterica del miele di Leptospermum per uso medico: spettro antibatterico, resistenza e analisi del trascrittoma. Eur. J. Clin. Microbiol. Infect. Dis. 28, 1199–1208. doi: 10.1007/s10096-009-0763-z
Blair, S. E. e Carter, D. A. (2005). Il potenziale del miele nella gestione delle ferite e delle infezioni. J. Austral. Infect. Control 10, 24–31.
Brady, N., Molan, P. e Harfoot, C. (1996). La sensibilità dei dermatofiti all'attività antimicrobica del miele di Manuka e di altri tipi di miele. Pharm. Pharmacol. Commun. 2, 471–473.
Carnwath, R., Graham, E. M., Reynolds, K. e Pollock, P. J. (2014). L'attività antimicrobica del miele contro i comuni isolati batterici dalle ferite equine. Vet. J. 199, 110–114. doi: 10.1016/j.tvjl.2013.07.003
Chen, C., Campbell, L., Blair, S. E. e Carter, D. A. (2012). Effetto del trattamento termico sulle proprietà antimicrobiche del miele. Front. Microbiol. 3:265. doi: 10.3389/fmicb.2012.00265
Cooper, R., Jenkins, L., Henriques, A., Duggan, R. e Burton, N. (2010). Assenza di resistenza batterica al miele di Manuka per uso medico. Eur. J. Clin. Microbiol. Infect. Dis. 29, 1237–1241. doi: 10.1007/s10096-010-0992-1
Cooper, R. A., Halas, E. e Molan, P. C. (2002a). L'efficacia del miele nell'inibire ceppi di Pseudomonas aeruginosa provenienti da ustioni infette. J. Burn Care Rehabil. 23, 366–370. doi: 10.1097/00004630-200211000-00002
Cooper, R. A. e Molan, P. C. (1999). L'uso del miele come antisettico nella gestione dell'infezione da Pseudomonas. J. Wound Care 8, 161–164. doi: 10.12968/jowc.1999.8.4.25867
Cooper, R. A., Molan, P. C. e Harding, K. G. (1999). Attività antibatterica del miele contro ceppi di Staphylococcus aureus provenienti da ferite infette. J. R. Soc. Med. 92, 283–285.
Cooper, R. A., Molan, P. C. e Harding, K. G. (2002b). Sensibilità al miele di cocchi Gram-positivi di rilevanza clinica isolati da ferite. J. Appl. Microbiol. 93, 857–863. doi: 10.1046/j.1365-2672.2002.01761.x
Cooper, R. A., Wigley, P. e Burton, N. F. (2000). Sensibilità al miele di ceppi multiresistenti di Burkholderia cepacia. Lett. Appl. Microbiol. 31, 20–24. doi: 10.1046/j.1472-765x.2000.00756.x
Dart, A., Bischofberger, A., Dart, C. e Jeffcott, L. (2015). Rassegna della ricerca sulla guarigione delle ferite equine per seconda intenzione utilizzando il miele Manuka: raccomandazioni attuali e applicazioni future. Equine Vet. Educ. 27, 658–664. doi: 10.1111/eve.12379
Estevinho, L., Pereira, A. P., Moreira, L., Dias, L. G. e Pereira, E. (2008). Effetti antiossidanti e antimicrobici degli estratti di composti fenolici del miele del Portogallo nord-orientale. Food Chem. Toxicol. 46, 3774–3779. doi: 10.1016/j.fct.2008.09.062
French, V. M., Cooper, R. A. e Molan, P. C. (2005). L'attività antibatterica del miele contro gli stafilococchi coagulasi-negativi. J. Antimicrobial Chemother. 56, 228–231. doi: 10.1093/jac/dki193
George, N. M. e Cutting, K. F. (2007). Miele antibatterico (Medihoney): attività in vitro contro isolati clinici di MRSA, VRE e altri organismi gram-negativi multiresistenti, inclusi Pseudomonas aeruginosa. Wounds 19:231.
Halstead, F. D., Webber, M. A., Rauf, M., Burt, R., Dryden, M. e Oppenheim, B. A. (2016). Attività in vitro di un miele ingegnerizzato, mieli per uso medico e medicazioni antimicrobiche per ferite contro isolati batterici clinici produttori di biofilm. J. Wound Care 25, 93–102. doi: 10.12968/jowc.2016.25.2.93
Hammond, E. N. e Donkor, E. S. (2013). Effetto antibatterico del miele di Manuka su Clostridium difficile. BMC Res. 6:188. doi: 10.1186/1756-0500-6-188
Henriques, A. F., Jenkins, R. E., Burton, N. F. e Cooper, R. A. (2010). Gli effetti intracellulari del miele di Manuka su Staphylococcus aureus. Eur. J. Clin. Microbiol. Infect. Dis. 29, 45–50. doi: 10.1007/s10096-009-0817-2
Henriques, A. F., Jenkins, R. E., Burton, N. F. e Cooper, R. A. (2011). L'effetto del miele di Manuka sulla struttura di Pseudomonas aeruginosa. Eur. J. Clin. Microbiol. Infect. Dis. 30, 167–171. doi: 10.1007/s10096-010-1065-1
Hudson, N. J., Dalrymple, B. P. e Reverter, A. (2012). Oltre l’espressione differenziale: la ricerca di mutazioni causali e molecole effettrici. BMC Genomics 13:356. doi: 10.1186/1471-2164-13-356
Irish, J., Blair, S. e Carter, D. (2011). L’attività antibatterica del miele derivato dalla flora australiana. PLoS ONE 6:e18229. doi: 10.1371/journal.pone.0018229
Irish, J., Carter, D. A., Shokohi, T. e Blair, S. E. (2006). Il miele ha un effetto antifungino contro le specie di Candida. Med. Mycol. 44, 289–291. doi: 10.1080/13693780600931986
Jenkins, R., Burton, N. e Cooper, R. (2011). Effetto del miele di Manuka sull’espressione della proteina A dello stress universale nello Staphylococcus aureus resistente alla meticillina. Int. J. Antimicrob. Agents 37, 373–376. doi: 10.1016/j.ijantimicag.2010.11.036
Jenkins, R., Burton, N. e Cooper, R. (2013). L’analisi proteomica e genomica dello Staphylococcus aureus resistente alla meticillina (MRSA), esposto al miele di Manuka in vitro, ha dimostrato una riduzione dell’espressione dei marcatori di virulenza. J. Antimicrobial Chemother. 69, 603–615. doi: 10.1093/jac/dkt430
Jenkins, R. e Cooper, R. (2012). Migliorare l'attività antibiotica contro i patogeni delle ferite con il miele Manuka in vitro. PLoS ONE 7:e45600. doi: 10.1371/journal.pone.0045600
Jenkins, R., Roberts, A. e Brown, H. L. (2015a). Sugli effetti antibatterici del miele Manuka: approfondimenti sui meccanismi. Res. Rep. Biol. 6, 215–224. doi: 10.2147/RRB.S75754
Jenkins, R., Wootton, M., Howe, R. e Cooper, R. (2015b). Dimostrazione della sensibilità degli isolati clinici ottenuti da pazienti affetti da fibrosi cistica al miele Manuka. Arch. Microbiol. 197, 597–601. doi: 10.1007/s00203-015-1091-6
Kalapos, M. P. (2008). Il binomio tra radicali liberi e metilgliossale. Chem. Biol. Interact. 171, 251–271. doi: 10.1016/j.cbi.2007.11.009
Kato, Y., Umeda, N., Maeda, A., Matsumoto, D., Kitamoto, N. e Kikuzaki, H. (2012). Identificazione di un nuovo glicoside, la leptosina, come marcatore chimico del miele Manuka. J. Agric. Food Chem. 60, 3418–3423. doi: 10.1021/jf300068w
Kilty, S. J., Duval, M., Chan, F. T., Ferris, W. e Slinger, R. (2011). Metilgliossale: (agente attivo del miele Manuka) attività in vitro contro i biofilm batterici. Int. Forum Allergy Rhinol. 1, 348–350. doi: 10.1002/alr.20073
Kronda, J. M., Cooper, R. A. e Maddocks, S. E. (2013). Il miele di Manuka inibisce la produzione di siderofori in Pseudomonas aeruginosa. J. Appl. Microbiol. 115, 86–90. doi: 10.1111/jam.12222
Kwakman, P. H., te Velde, A. A., de Boer, L., Vandenbroucke-Grauls, C. M. e Zaat, S. A. (2011). Due importanti mieli medicinali presentano meccanismi diversi di attività battericida. PLoS ONE 6:e17709. doi: 10.1371/journal.pone.0017709
Lee, J.-H., Park, J.-H., Kim, J.-A., Neupane, G. P., Cho, M. H., Lee, C.-S., et al. (2011). Basse concentrazioni di miele riducono la formazione di biofilm, il quorum sensing e la virulenza in Escherichia coli O157: H7. Biofouling 27, 1095–1104. doi: 10.1080/08927014.2011.633704
Lin, S. M., Molan, P. C. e Cursons, R. T. (2011). La suscettibilità controllata in vitro dei patogeni gastrointestinali all'effetto antibatterico del miele di Manuka. Eur. J. Clin. Microbiol. Infect. Dis. 30, 569–574. doi: 10.1007/s10096-010-1121-x
Liu, M., Lu, J., Müller, P., Turnbull, L., Burke, C. M., Schlothauer, R. C., et al. (2014). Differenze specifiche degli antibiotici nella risposta di Staphylococcus aureus al trattamento con antimicrobici combinati con miele di Manuka. Front. Microbiol. 5:779. doi: 10.3389/fmicb.2014.00779
Lu, J., Carter, D. A., Turnbull, L., Rosendale, D., Hedderley, D., Stephens, J. et al. (2013). L'effetto dei mieli kanuka, manuka e di trifoglio della Nuova Zelanda sulle dinamiche di crescita batterica e sulla morfologia cellulare varia a seconda della specie. PLoS ONE8:e55898. doi: 10.1371/journal.pone.0055898
Lu, J., Turnbull, L., Burke, C. M., Liu, M., Carter, D. A., Schlothauer, R. C. et al. (2014). I mieli tipo Manuka possono eliminare i biofilm prodotti da ceppi di Staphylococcus aureus con diverse capacità di formare biofilm. PeerJ 2:e326. doi: 10.7717/peerj.326
Maddocks, S. E., Jenkins, R. E., Rowlands, R. S., Purdy, K. J. e Cooper, R. A. (2013). Il miele Manuka inibisce l'adesione e l'invasione di batteri delle ferite clinicamente importanti in vitro. Fut. Microbiol. 8, 1523–1536. doi: 10.2217/fmb.13.126
Maddocks, S. E., Lopez, M. S., Rowlands, R. S. e Cooper, R. A. (2012). Il miele Manuka inibisce lo sviluppo di biofilm di Streptococcus pyogenes e riduce l'espressione di due proteine leganti la fibronectina. Microbiology 158, 781–790. doi: 10.1099/mic.0.053959-0
Majtan, J. (2014). Il miele: un immunomodulatore nella guarigione delle ferite. Wound Repair Regenerat. 22, 187–192. doi: 10.1111/wrr.12117
Majtan, J., Bohova, J., Horniackova, M., Klaudiny, J. e Majtan, V. (2014a). Effetti antibiofilm del miele contro i patogeni delle ferite Proteus mirabilis e Enterobacter cloacae. Phytother. Res. 28, 69–75. doi: 10.1002/ptr.4957
Majtan, J., Bohova, J., Prochazka, E. e Klaudiny, J. (2014b). Il metilgliossale può influire sull’accumulo di perossido di idrogeno nel miele di Manuka attraverso l’inibizione della glucosio ossidasi. J. Med. Food 17, 290–293. doi: 10.1089/jmf.2012.0201
Majtan, J., Klaudiny, J., Bohova, J., Kohutova, L., Dzurova, M., Sediva, M. et al. (2012). Modificazioni indotte dal metilgliossale di componenti proteici significativi dell’ape da miele nel miele di Manuka: possibili implicazioni terapeutiche. Fitoterapia 83, 671–677. doi: 10.1016/j.fitote.2012.02.002
Majtan, J., Majtanova, L., Bohova, J. e Majtan, V. (2011). Il miele di melata come potente agente antibatterico per l’eradicazione di isolati multiresistenti di Stenotrophomonas maltophilia da pazienti oncologici. Phytother. Res. 25, 584–587. doi: 10.1002/ptr.3304
Malone, L. A., Gatehouse, H. S. e Tregidga, E. L. (2001). Effetti del tempo, della temperatura e del miele su Nosema apis (Microsporidia: Nosematidae), un parassita dell’ape da miele, Apis mellifera (Hymenoptera: Apidae). J. Invertebrate Pathol. 77, 258–268. doi: 10.1006/jipa.2001.5028
Mavric, E., Wittmann, S., Barth, G. e Henle, T. (2008). Identificazione e quantificazione del metilgliossale come principale componente antibatterico dei mieli di Manuka (Leptospermum scoparium) provenienti dalla Nuova Zelanda. Mol. Nutrit. Food Res. 52, 483–489. doi: 10.1002/mnfr.200700282
Molan, P. M. (2008). Spiegazione del motivo per cui il livello di MGO nel miele di Manuka non riflette l'attività antibatterica. New Zealand Beekeeper 16, 11–13.
Mullai, V. e Menon, T. (2007). Attività battericida di diversi tipi di miele contro isolati clinici e ambientali di Pseudomonas aeruginosa. J. Alternat. Complement. Med. 13, 439–442. doi: 10.1089/acm.2007.6366
Müller, P., Alber, D. G., Turnbull, L., Schlothauer, R. C., Carter, D. A., Whitchurch, C. B. et al. (2013). Sinergia tra Medihoney e rifampicina contro Staphylococcus aureus resistente alla meticillina (MRSA). PLoS ONE 8:e57679. doi: 10.1371/journal.pone.0057679
Mundo, M. A., Padilla-Zakour, O. I. e Worobo, R. W. (2004). Inibizione della crescita di patogeni di origine alimentare e microrganismi responsabili del deterioramento degli alimenti da parte di alcuni mieli grezzi. Int. J. Food Microbiol. 97, 1–8. doi: 10.1016/j.ijfoodmicro.2004.03.025
Nilforoushzadeh, M. A., Jaffary, F., Moradi, S., Derakhshan, R. e Haftbaradaran, E. (2007). Effetto dell'applicazione topica di miele associata all'iniezione intralesionale di glucantime nel trattamento della leishmaniosi cutanea. BMC Complement Altern. Med. 7:1. doi: 10.1186/1472-6882-7-1
Norton, A. M., McKenzie, L. N., Brooks, P. R. e Pappalardo, L. J. (2015). Quantificazione del diidrossiacetone nel nettare australiano di Leptospermum mediante cromatografia liquida ad alte prestazioni. J. Agric. Food Chem. 63, 6513–6517. doi: 10.1021/acs.jafc.5b01930
Okhiria, O., Henriques, A., Burton, N., Peters, A. e Cooper, R. (2009). Il miele modula i biofilm di Pseudomonas aeruginosa in modo dipendente dal tempo e dalla dose. J. ApiProduct. ApiMedical Sci. 1, 6–10. doi: 10.3896/IBRA.4.01.1.03
Osato, M. S., Reddy, S. G. e Graham, D. Y. (1999). Effetto osmotico del miele sulla crescita e la vitalità di Helicobacter pylori. Dig. Dis. Sci. 44, 462–464. doi: 10.1023/A:1026676517213
Packer, J. M., Irish, J., Herbert, B. R., Hill, C., Padula, M., Blair, S. E., et al. (2012). Specifico effetto antibatterico non perossidico del miele di Manuka sul proteoma di Staphylococcus aureus. Int. J. Antimicrob. Agents 40, 43–50. doi: 10.1016/j.ijantimicag.2012.03.012
Regulski, M. (2008). Una nuova medicazione per la cura delle ferite nelle ulcerazioni croniche delle gambe. Podiatry Manag. 27, 235–246.
Roberts, A. E., Maddocks, S. E. e Cooper, R. A. (2012). Il miele di Manuka è battericida contro Pseudomonas aeruginosa e determina un'espressione differenziale di oprF e algD. Microbiology 158, 3005–3013. doi: 10.1099/mic.0.062794-0
Roberts, A. E. L., Maddocks, S. E. e Cooper, R. A. (2015). Il miele di Manuka riduce la motilità di Pseudomonas aeruginosa sopprimendo i geni associati ai flagelli. J. Antimicrob. Chemother. 70, 716–725. doi: 10.1093/jac/dku448
Sajid, M. e Azim, M. K. (2012). Caratterizzazione dell'attività nematocida del miele naturale. J. Agric. Food Chem. 60, 7428–7434. doi: 10.1021/jf301653n
Shahzad, A. e Cohrs, R. J. (2012). Attività antivirale in vitro del miele contro il virus varicella-zoster (VZV): uno studio di medicina traslazionale su un possibile trattamento per l'herpes zoster. Transl. Biomed. 3:2.
Sherlock, O., Dolan, A., Athman, R., Power, A., Gethin, G., Cowman, S. et al. (2010). Confronto dell'attività antimicrobica del miele di Ulmo proveniente dal Cile e del miele di Manuka contro Staphylococcus aureus resistente alla meticillina, Escherichia coli e Pseudomonas aeruginosa. BMC Complement Altern. Med. 10:47. doi: 10.1186/1472-6882-10-47
Silva-Rocha, R. e de Lorenzo, V. (2010). Rumore e robustezza nelle reti regolatorie procariotiche. Annu. Rev. Microbiol. 64, 257–275. doi: 10.1146/annurev.micro.091208.073229
Smith, T., Hanft, J. R. e Legel, K. (2009). Miele di Leptospermum per uso topico nelle ferite venose della gamba resistenti al trattamento: una serie preliminare di casi. Adv. Skin Wound Care 22, 68–71. doi: 10.1097/01.ASW.0000345283.05532.9a
Soffer, A. (1976). Chihuahua e laetrile, terapia chelante e miele di Boulder, Colorado [editorial]. Arch. Intern. Med.136, 865–866. doi: 10.1001/archinte.136.8.865
Sojka, M., Valachova, I., Bucekova, M. e Majtan, J. (2016). Efficacia antibiofilm del miele e della defensina-1 derivata dalle api sul biofilm delle ferite multispecie. J. Med. Microbiol. doi: 10.1099/jmm.0.000227 [pubblicazione elettronica anticipata].
Stephens, J. M., Schlothauer, R. C., Morris, B. D., Yang, D., Fearnley, L., Greenwood, D. R., et al. (2010). Composti fenolici e metilgliossale in alcuni mieli neozelandesi di Manuka e kanuka. Food Chem. 120, 78–86. doi: 10.1016/j.foodchem.2009.09.074
Tan, H. T., Rahman, R. A., Gan, S. H., Halim, A. S., Hassan, S. A., Sulaiman, S. A., et al. (2009). Le proprietà antibatteriche del miele tualang malese contro i microrganismi delle ferite e intestinali rispetto al miele Manuka. BMC Complement Altern. Med. 9:34. doi: 10.1186/1472-6882-9-34
Watanabe, K., Rahmasari, R., Matsunaga, A., Haruyama, T. e Kobayashi, N. (2014). Effetti antivirali contro l'influenza del miele in vitro: elevata attività del miele di Manuka. Arch. Med. Res. 45, 359–365. doi: 10.1016/j.arcmed.2014.05.006
Wilkinson, J. M. e Cavanagh, H. M. A. (2005). Attività antibatterica di 13 mieli contro Escherichia coli e Pseudomonas aeruginosa. J. Med. Food 8, 100–103. doi: 10.1089/jmf.2005.8.100
Williams, S., King, J., Revell, M., Manley-Harris, M., Balks, M., Janusch, F. et al. (2014). Variazioni regionali, annuali e individuali del contenuto di diidrossiacetone nel nettare di Manuka (Leptospermum scoparium) in Nuova Zelanda. J. Agric. Food Chem. 62, 10332–10340. doi: 10.1021/jf5045958
Willix, D. J., Molan, P. C. e Harfoot, C. G. (1992). Confronto della sensibilità dei batteri responsabili delle infezioni delle ferite all'attività antibatterica del miele di Manuka e di altri mieli. J. Appl. Bacteriol. 73, 388–394. doi: 10.1111/j.1365-2672.1992.tb04993.x
Windsor, S., Pappalardo, M., Brooks, P., Williams, S. e Manley-Harris, M. (2012). Una nuova analisi pratica del diidrossiacetone e del metilgliossale applicata ai mieli australiani di Leptospermum. J. Pharmacogn. Phytother. 4, 6–11.
Fonte: Miele di Manuka terapeutico: non più così alternativo - https://www.frontiersin.org/articles/10.3389/fmicb.2016.00569/full
Lascia un commento