Terápiás Manuka méz: már nem annyira alternatív
A gyógyászati mézzel kapcsolatos kutatások jelentős újjáéledésen mennek keresztül. A népi gyógymódból, amelyet a hagyományos orvoslás nagyrészt „alternatívként” elutasított, mára a tudósok, a klinikai szakemberek és a nagyközönség körében is fokozódó érdeklődés alakult ki a méz terápiás felhasználása iránt. Ennek az érdeklődésnek több mozgatórugója van: először is, számos bakteriális kórokozó antibiotikum-rezisztenciájának növekedése új antibakteriális szerek kifejlesztése és alkalmazása iránti érdeklődést váltott ki; másodszor, egyre több megbízható tanulmány és esetbeszámoló bizonyította, hogy bizonyos mézek nagyon hatékonyan használhatók sebek kezelésére; harmadszor, a terápiás méz prémium áron értékesíthető, és a mézipar aktívan támogatja azokat a kutatásokat, amelyek ezt lehetővé teszik számára; végül pedig a méz rendkívül összetett és meglehetősen kiszámíthatatlan természete vonzó kihívást jelent a laboratóriumi kutatók számára. Ebben a tanulmányban áttekintjük a Manuka mézzel kapcsolatos kutatásokat, a mikrobaellenes hatásairól végzett megfigyeléses vizsgálatoktól a jelenlegi kísérleti és mechanisztikus munkákig, amelyek célja, hogy a méz a hagyományos orvoslás részévé váljon. Bemutatjuk a méz hatásmechanizmusával kapcsolatos ismereteink jelenlegi hiányosságait és fennmaradó vitás kérdéseit, valamint olyan új kutatásokat javaslunk, amelyek révén a méz többé nem „alternatív” alternatíva lehetne.
Bevezetés
A mézet az emberiség történelme során gyógyszerként használták. A méz egyik leggyakoribb és leginkább tartós terápiás alkalmazása sebkötözőként történt, szinte bizonyosan antimikrobiális tulajdonságai miatt. A rendkívül hatékony antibiotikumok megjelenésével az 1960-as években a mézet „értéktelen, de ártalmatlan anyagként” (Soffer, 1976) utasították el. Az antibiotikum-rezisztencia jelenlegi és egyre súlyosbodó válsága azonban újjáélesztette az érdeklődést a méz alkalmazása iránt, mind önmagában hatékony szerként, mind pedig új kezelési módszerek kifejlesztésének terápiás kiindulópontjaként. A méz általában virágok nektárjából származik, és a méhek állítják elő, leggyakrabban az európai mézelő méh (Apis mellifera); összetett cukor-, aminosav-, fenol- és egyébanyag-keverék. A különböző virágos növényekből származó mézfajták jelentősen eltérnek baktériumölő képességükben, ami megnehezítette a mézzel kapcsolatos szakirodalom értelmezését, és olykor az eredmények különböző vizsgálatok közötti reprodukálását is (Allen et al., 1991; Irish et al., 2011). A méz hatásmechanizmusát vizsgáló újabb tanulmányok többsége a jól jellemzett, szabványosított, aktív Manuka mézre összpontosított, amelyet az Új-Zélandon és Ausztráliában őshonos bizonyos Leptospermum-fajok állítanak elő, és amelyet a megfelelő egészségügyi szabályozó szerveknél sebkezelési termékként jegyeztek be. Ezért eltérő jelzés hiányában ez az áttekintés a Manuka mézre összpontosít.
Az aktív Manuka méz kémiai elemzései
A Waikato Egyetem (Új-Zéland) professzora, Peter Molan számolt be elsőként a manukaméz szokatlan aktivitásáról, és az 1980-as évek közepén kezdte vizsgálni annak hatását számos különböző baktériumfajjal szemben. Bár egyértelmű volt, hogy a manukaméz még alacsony koncentrációban is elpusztítja a bakteriális kórokozókat, az ezért felelős konkrét hatóanyag sok éven át ismeretlen maradt. A magas cukortartalom és az alacsony pH gátolja a mikrobák szaporodását a mézben, az aktivitás azonban akkor is fennmarad, amikor ezeket elhanyagolható szintre hígítják. Számos különböző mézfajta is hidrogén-peroxidot termel, amikor a mézelő méhből származó glükóz-oxidáz reakcióba lép a glükózzal és a vízzel. A manukamézben azonban a hidrogén-peroxid termelődése viszonylag alacsony, és a kataláz semlegesítheti, az aktivitás mégis fennmarad. Ennek a fennmaradó aktivitásnak az okát, amelyet „nem-peroxidos aktivitásnak” vagy NPA-nak neveztek el, végül 2008-ban tárták fel, amikor két laboratórium egymástól függetlenül azonosította a metil-glioxált (MGO) a manukamézben (Adams et al., 2008; Mavric et al., 2008). Az MGO prekurzorának, a dihidroxi-acetonnak (DHA) spontán dehidratációjából keletkezik. A DHA egy természetesen előforduló fitokemikália, amely a Leptospermum scoparium, Leptospermum polygalifolium, valamint az Új-Zélandon és Ausztráliában őshonos, ezekkel rokon Leptospermum fajok virágainak nektárjában található (Adams et al., 2009; Williams et al., 2014; Norton et al., 2015). Az MGO viszonylag nem specifikusan reagálhat olyan makromolekulákkal, mint a DNS, az RNS és a fehérjék (Adams et al., 2008; Mavric et al., 2008; Majtan et al., 2014b), és elméletileg mérgező lehet az emlőssejtekre (Kalapos, 2008). Nincs azonban bizonyíték arra, hogy a manukaméz károsítaná a gazdaszervezet sejtjeit akár szájon át fogyasztva, akár sebkötözőként alkalmazva; sőt úgy tűnik, hogy a méz elősegíti a gyógyulást és csökkenti a hegesedést, amikor sebekre alkalmazzák (Biglari et al., 2013; Majtan, 2014; Dart et al., 2015). Nem ismert, hogyan fejti ki ezt a baktériumsejtekkel szembeni látszólag szelektív toxicitást.
A magas MGO- vagy hidrogén-peroxid-szint általában a legaktívabb mézet eredményezi, azonban az összefüggés nem mindig tökéletes, ami arra utal, hogy a méz egyéb összetevői módosíthatják az aktivitást (Molan, 2008; Kwakman et al., 2011; Chen et al., 2012; Lu et al., 2013). A méhek által termelt antimikrobiális peptid, a defenzin-1 felelős a Revamil méz aktivitásáért; ez a méz ismeretlen forrásból származik, azonban úgy tűnik, hogy a manukamézben szerkezetileg módosult és inaktív (Kwakman et al., 2011; Majtan et al., 2012). A kizárólag a Leptospermum mézben megtalálható glikozid, a leptozin szintje összefügg a hatáserősséggel, és módosíthatja a manukaméz antimikrobiális aktivitását (Kato et al., 2012). Hasonlóképpen különféle, lehetséges antimikrobiális hatással rendelkező fenolos vegyületek is jelen lehetnek, különösen a sötétebb színű mézekben, és bár olyan koncentrációban fordulnak elő, amely önmagában valószínűleg nem gátló hatású, egymással vagy a méz más összetevőivel szinergikusan együttműködve létrehozhatják vagy módosíthatják az aktivitást (Estevinho et al., 2008; Stephens et al., 2010). A fenolos vegyületek antioxidánsként is működhetnek, és felelősek lehetnek a méz gyulladáscsökkentő, valamint sebgyógyulást segítő tulajdonságaiért (Stephens et al., 2010). Fontos megjegyezni, hogy nem minden Leptospermum faj termel aktív mézet, és még az L. scoparium és az L. polygalifolium mézében is körülbelül 100 és >1200 ppm között változhat az MGO-szint (Windsor et al., 2012). Egy ausztrál mézek aktivitását vizsgáló felmérés szerint a New South Wales és Queensland határvidékén növő Leptospermum növényekről származó méz különösen aktív volt, de nem ismert, hogy ez a növényeknek, a talajnak, az éghajlatnak vagy más tényezőknek köszönhető-e (Irish et al., 2011).
A kórokozók méz általi gátlása
A mézet in vitro számos különböző kórokozón tesztelték, különösen olyanokon, amelyek kolonizálhatják a bőrt, a sebeket és a nyálkahártyákat, ahol lehetséges a méz helyi alkalmazása. Eddig az in vitro vizsgálatok azt mutatták, hogy a Manuka méz hatékonyan gátolja az összes vizsgált, problémát okozó bakteriális kórokozót (összefoglalva az 1. táblázatban). Különösen figyelemre méltó, hogy a több gyógyszerrel szembeni rezisztenciát mutató (MDR) klinikai izolátumok méz iránti érzékenysége sem csökkent, ami széles hatásspektrumra utal, és eltér minden ismert antimikrobiális szerétől (Willix et al., 1992; Blair és Carter, 2005; George és Cutting, 2007; Tan et al., 2009). Emellett a laboratóriumban nem sikerült mézrezisztens törzseket létrehozni, és nem számoltak be mézzel szemben szerzett rezisztenciát mutató klinikai izolátumról sem (Blair et al., 2009; Cooper et al., 2010).
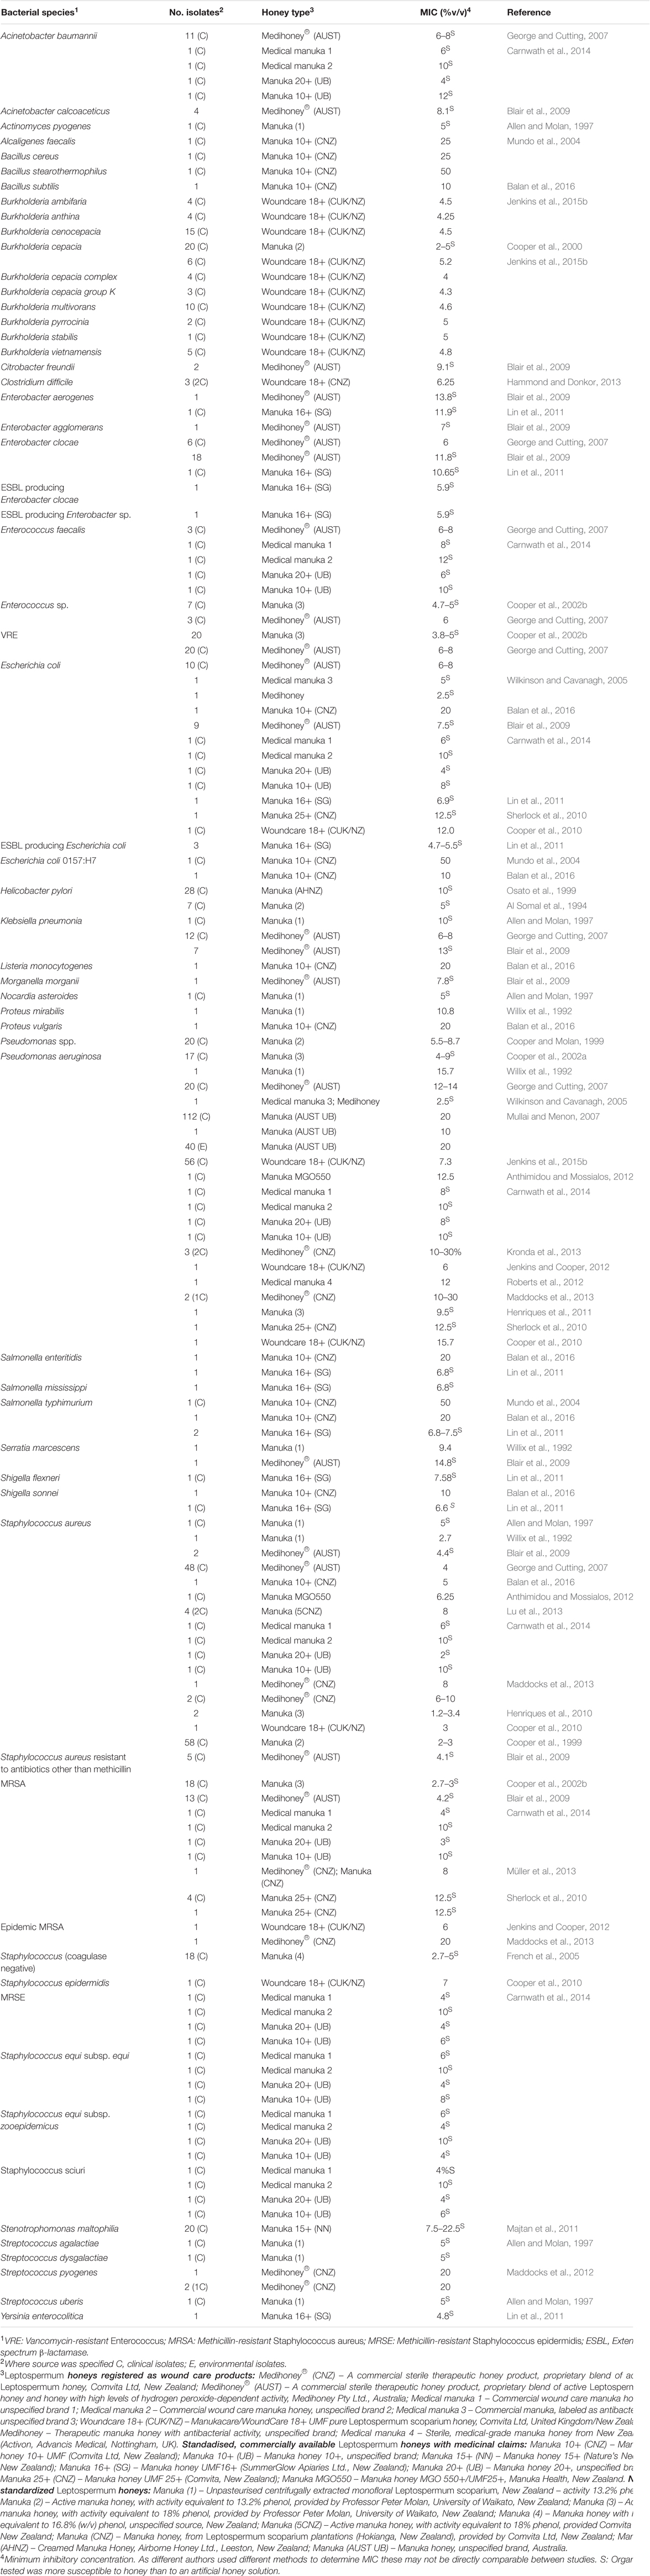
1. TÁBLÁZAT. A terápiás Manuka mézre érzékenynek bizonyult baktériumfajok.
A planktonikus sejteket gátló hatása mellett a méz a biofilmekben élő baktériumokat is képes szétszórni és elpusztítani. A biofilmek olyan sejtközösségek, amelyek általában a sejtek által termelt extracelluláris mátrixba zárva találhatók, és különböző felületekhez tapadnak, például sebekhez, fogakhoz, nyálkahártyákhoz és beültetett eszközökhöz. A biofilmekben élő mikrobákat védi az antimikrobiális szerek hatásától, és tartós, nem gyógyuló fertőzéseket okozhatnak. A Manuka méz felbontja a sejtaggregátumokat (Maddocks et al., 2012; Roberts et al., 2012), és számos problémát okozó kórokozó - köztük a Streptococcus és Staphylococcus fajok, a Pseudomonas aeruginosa, Escherichia coli, Proteus mirabilis, Enterobacter cloacae, Acinetobacter baumannii és a Klebsiella pneumonia - biofilmjeinek kialakulását (Maddocks et al., 2012, 2013; Lu et al., 2014; Majtan et al., 2014a; Halstead et al., 2016) is megakadályozza. Fontos, hogy a méz a már kialakult biofilmeket is felbonthatja, és elpusztíthatja a bennük élő sejteket, bár ehhez magasabb koncentráció szükséges, mint a planktonikus sejtek esetében (Okhiria et al., 2009; Maddocks et al., 2013; Lu et al., 2014; Majtan et al., 2014a). Nagyon nemrégiben a Manuka mézet egy többfajú, Staphylococcus aureus, Streptococcus agalactiae, Pseudomonas aeruginosa és Enterococcus faecalis baktériumot tartalmazó biofilmen is tesztelték, és azt találták, hogy az E. faecalis kivételével minden faj életképességét csökkentette; ezt a fajt nem sikerült kiirtani (Sojka et al., 2016). Ennek egyértelmű klinikai jelentősége van a biofilmeket tartalmazó sebek mézzel történő kezelése szempontjából, és fontos, érdekes jövőbeli kutatási terület annak megértése, hogyan teszi lehetővé a biofilm az E. faecalis túlélését, miközben a méz normális esetben elpusztítja. Úgy tűnik, hogy a Manuka méz biofilmeket gátló hatásáért nagyrészt, de nem teljes mértékben az MGO felelős, ami ismét rávilágít a hatást módosító további összetevők fontosságára (Kilty et al., 2011; Lu et al., 2014).
A méz nem bakteriális kórokozókkal szembeni aktivitásának spektruma még nem teljesen ismert. A Manuka méz vírusellenes hatását vizsgáló újabb tanulmányok szerint potenciálisan alkalmazható a varicella-zoster vírus (a bárányhimlő és az övsömör kórokozója) (Shahzad and Cohrs, 2012) és az influenza kezelésére (Watanabe et al., 2014). A bőr gombás kórokozói, köztük a Candida albicans és a dermatofitonfajok, lényegesen kevésbé érzékenyek a Manuka mézre, mint a baktériumok, de a nagy mennyiségű hidrogén-peroxidot termelő méz gátolja őket (Brady et al., 1996; Irish et al., 2006). Megállapították, hogy a Manuka és a nem Manuka méz egyaránt csökkenti a méhek fontos kórokozójának, a mikrospórás Nosema apis spóráinak életképességét, a méz azonban nem tudta meggyógyítani a méheket, miután a fertőzés már kialakult (Malone et al., 2001). Nagyon kevés vizsgálat foglalkozott a méz protozoon- vagy helminthparaziták elleni alkalmazásával, és ezekben nem jól jellemzett aktivitású mézet használtak, ezért eredményeik jelentősége nehezen értékelhető (Bassam et al., 1997; Nilforoushzadeh et al., 2007; Sajid and Azim, 2012).
A méz beemelése a főáramú gyógyászatba: a legújabb kísérleti és mechanisztikus vizsgálatok rávilágítanak a méz hatásmechanizmusára
Az aktív Manuka méz széles körben elérhető terápiás szerként és funkcionális élelmiszerként, és a fogyasztók többsége holisztikus, kissé rejtélyes termékként tekint rá. Annak hiánya azonban, hogy megértsük, miként pusztítja el a méz a baktériumokat és hogyan segíti elő a gyógyulást, korlátozza elfogadottságát a konvencionális orvoslásban, ahol továbbra is „alternatív” vagy „kiegészítő” kezelésnek tekintik. A mézzel kapcsolatos eddigi kutatások túlnyomó többsége leíró jellegű volt, az újabb vizsgálatok azonban már azt próbálják feltárni, hogyan fejti ki hatását a méz, és mechanisztikus megközelítésekkel igyekeznek meghatározni, miként hat sejtes és molekuláris szinten.
A mézzel kezelt baktériumsejtek és -közösségek ultrastrukturális vizsgálatai
A méz jelentősen megváltoztathatja a baktériumsejtek méretét és alakját, bár ennek mértéke különböző baktériumfajok esetében eltérő. Transzmissziós elektronmikroszkópiával (TEM) vizsgálva a Manuka mézzel kezelt S. aureus-tenyészetekben több olyan sejt volt, amelyben a szeptumok már kialakultak, mint a mesterséges mézzel kezelt tenyészetekben. Ez arra utal, hogy a sejtek beléptek a sejtciklus osztódási szakaszába, de nem tudták azt befejezni, noha pásztázó elektronmikroszkóppal (SEM) kívülről ezek a sejtek normálisnak tűntek (Henriques et al., 2010). Újabban egy szubletális adag Manuka mézzel végzett kezelést követő fáziskontrasztos képalkotás azt mutatta, hogy az S. aureus és a Bacillus subtilis sejtjei jelentősen kisebbek voltak, és nagyobb valószínűséggel tartalmaztak kondenzálódott DNS-t, mint a méz nélkül növekvő sejtek (Lu et al., 2013). Nehéz közvetlenül összehasonlítani ezeket a vizsgálatokat, mivel különböző mennyiségű mézet és eltérő kezelési időket alkalmaztak, de az eredmények összességében a növekedés és a sejtosztódás szétkapcsolódására utalnak, ami gyakran megfigyelhető tápanyag- és környezeti stressz hatására (Silva-Rocha and de Lorenzo, 2010).
A mézzel végzett kezelésről beszámoltak, hogy a Gram-negatív fajok, az E. coli és a P. aeruginosa tenyészeteiben rendellenesen rövidebb és hosszabb sejtek egyaránt kialakulnak (Lu et al., 2013). Érdekes módon, miközben a P. aeruginosa látszólag kevésbé érzékeny a méz általi gátlásra, mint más fajok, TEM- és SEM-vizsgálattal jelentős sejtszintű változásokat figyeltek meg, többek között barázdákat és hólyagos kitüremkedéseket (a sejtplazmamembrán kitüremkedéseit) a sejtfelszínen, valamint jelentős mennyiségű sejten kívüli törmeléket, ami sejtlízisre utal (Henriques et al., 2011). Ezt egy későbbi, BacLight élő-elhalt fluoreszcens festést és konfokális mikroszkópiát alkalmazó vizsgálat is megerősítette, bár az azt is kimutatta, hogy viszonylag sok élő sejt maradt fenn. Ezek a vizsgálatok 20%-os (m/v) mézet használtak, amely magasabb volt a P. aeruginosa vizsgált törzsére jellemző MBC-értéknél, ezért jelentős gátlás és sejtpusztulás volt várható. Azonban szub-baktericid koncentrációk mellett végzett atomerő-mikroszkópos (AFM-) vizsgálat is jelentős sejttorzulást és hólyagosodást mutatott az MIC (12%) és a fél-MIC (6%) koncentrációval kezelt sejtekben, továbbá jelentős sejtlízist is kimutatott (Roberts et al., 2012). A P. aeruginosa sejteknek ezt a látszólagos degenerációját megerősítette a kvantitatív PCR-elemzés, amely szerint a mézzel kezelt sejtekben tízszeres csökkenés volt megfigyelhető az oprF gén expressziójában; ez a gén egy, a strukturális stabilitás szempontjából fontos külső membránporint kódol (Jenkins et al., 2015a).
Az omikai elemzések a méz általi gátlás teljes sejtszintű válaszát mérik
Az egész sejtre kiterjedő kimenetek vizsgálatának lehetősége forradalmasította a gyógyszer-kórokozó kölcsönhatások tanulmányozását, és különösen értékes az olyan összetett természetes termékek esetében, mint a méz, amelyek várhatóan több folyamatra is hatással vannak. A méznek kitett baktériumok mikroarray- és proteomikai vizsgálatai a stresszhez kapcsolódó folyamatok aktiválódását és a fehérjeszintézis visszaszorulását jelezték (Blair et al., 2009;\u00a0Jenkins et al., 2011;\u00a0Packer et al., 2012). Bár ez összességében meglehetősen tipikus a gátló szerekre adott válasz esetében, a méz a differenciális génexpresszió egyedi „mintázatát” hozta létre, amely számos hipotetikus vagy ismeretlen funkciójú fehérjét tartalmazott, ami új hatásmechanizmusra utal. Az S. aureus és az E. coli O157/H7 „omics” elemzéseiben alulszabályozottnak talált specifikus gének vagy fehérjék virulenciával, kvórumérzékeléssel és biofilm-képződéssel kapcsolatos funkciókat látnak el (Lee et al., 2011;Jenkins et al., 2013), míg a P. aeruginosa esetében a flagellumképzésben részt vevő fehérjék alulszabályozása volt megfigyelhető (Roberts et al., 2015). Ezek a fenotípusok kulcsfontosságúak ahhoz, hogy a kórokozók megtelepedjenek és invazív fertőzést hozzanak létre, és arra utalnak, hogy a méz a növekedés gátlása mellett a fertőzést okozó baktériumok patogén potenciálját is csökkentheti.
Bár az eddig elvégzett „omics” elemzések száma és hatóköre még viszonylag korlátozott, összetett sejtválaszra utalnak a mézzel szemben, amely jelentősen eltérhet a különböző baktériumfajokban. Az adatok kontextusba helyezését lehetővé tevő fejlett rendszerszintű biológiai megközelítésekre, valamint kvantitatív PCR-rel és génkieséses törzsekkel végzett validációs vizsgálatokra van szükség e komplexitás feltárásához; ezek új gyógyszeres terápiás megközelítéseket tárhatnak fel a baktériumok növekedésének gátlására (Hudson et al., 2012).
A méz és a hagyományos antibiotikumok közötti kölcsönhatások
Amellett, hogy önálló szerként alkalmazható, a méz a hagyományos antibiotikum-kezelés kiegészítésére is használható. Ez különösen akkor lehet értékes, ha olyan szisztémás szerekkel kombinálják, amelyek a vérkeringésen keresztül juttathatók el a sebágyhoz, miközben a mézet helyileg alkalmazzák. A kombinált kezelések az antimikrobiális szerek terápiás dózisát is csökkenthetik, és megelőzhetik a rezisztencia kialakulását; egyes esetekben pedig gyógyszerszinergiát eredményezhetnek, amikor a kombinált hatás nagyobb, mint az egyes gyógyszerek külön-külön kifejtett hatásának összege.
Az antibiotikumokat terápiás célra engedélyezett manukamézzel kombináló in vitro vizsgálatok szinergikus hatást mutattak ki oxacillinnel, tetraciklinnel, imipenemmel és mupirocinnal egy MRSA-törzs szaporodásával szemben (Jenkins és Cooper, 2012). Emellett a méz szubinhibitoros koncentrációjának oxacillinnel való kombinációja visszaállította az MRSA-törzs oxacillinnel szembeni érzékenységét. A szerzők a mecR1 gén csökkent szabályozását találták, amely egy MRSA-specifikus penicillinkötő fehérjét (PBP2A) kódol, és ezt a méz szinergikus hatásának egyik lehetséges mechanizmusaként javasolták. Erős szinergikus hatást figyeltek meg a manukaméz és a rifampicin között több S. aureus-törzzsel, köztük klinikai izolátumokkal és MRSA-törzsekkel szemben; a méz jelenléte továbbá megakadályozta a rifampicinrezisztencia kialakulását in vitro (Müller és munkatársai, 2013). Ennek klinikai jelentősége van, mivel a rifampicin jól bejut a szövetekbe és a tályogokba, és gyakran alkalmazzák felületes staphylococcus-fertőzések kezelésére, ugyanakkor gyorsan rezisztenciát alakít ki, ezért egy másik szerrel kombinálva kell alkalmazni. A vizsgálat további megállapítása szerint a szinergia nem az MGO-nak volt köszönhető, mivel az MGO-val dúsított szintetikus méz nem mutatott szinergikus hatást rifampicinnel kombinálva.
A méz jól jellemzett hatásmechanizmusú antimikrobiális szerek működésére gyakorolt hatásának megértése a méz bakteriális kórokozókra gyakorolt hatásának megértését is elősegítheti. Liu és munkatársai (2014) a szinergia elemzését további antibiotikumokra, valamint különböző S. aureus- és MRSA-törzsekre is kiterjesztették. Felvetették, hogy a klindamicinnel és gentamicinnel szembeni fokozott érzékenység a méz által előidézett, csökkent fehérjeszintézis és az antibiotikumok riboszómagátlásának együttes hatásából eredhet, míg a β-laktám antibiotikumokkal megfigyelt szinergiát mindkét komponens által okozott fokozott oxidatív stressz magyarázhatja. Mivel az S. aureus- és MRSA-törzsek egyformán érzékenyek voltak az oxacillin-méz kombinációra, úgy tűnt, hogy a szinergia kialakulásának oka valószínűleg nem a PBP2A csökkent szabályozása. Egy klinikai MRSA-izolátum esetében azonban a méz jelenléte nem növelte a klindamicinnel vagy gentamicinnel szembeni érzékenységet, ami figyelemre méltó, mivel ez az első jelentett eset, amelyben az MRSA és az S. aureus eltérően reagált a mézre. E törzsspecifikus különbség transzkriptomikai vagy proteomikai elemzésekkel történő vizsgálata érdekes irányt jelenthet a jövőbeli kutatások számára (Liu és munkatársai, 2014).
A hatásosság bizonyítékai állatkísérletekből, esetismertetésekből és klinikai vizsgálatokból
A Manuka mézet előállító és forgalmazó vállalatok magas etikai normákat képviselnek, és ellenzik az állatmodellek alkalmazását a fertőzések és a sebgyógyulás vizsgálatában. A Manuka mézet azonban alkalmazták már műtéti vagy baleseti eredetű sebekkel rendelkező állatok, különösen lovak kezelésére, pozitív eredményekkel (Dart et al., 2015; Bischofberger et al., 2016). Nem gyógyuló sebek és fekélyek mézzel történő kezeléséről szóló esetleírások jelentős javulásról számoltak be, a fertőzés megszűnésével olyan esetekben, amikor a hagyományos antibiotikumok hatástalannak bizonyultak (Regulski, 2008; Smith et al., 2009). Ennek ellenére, valamint annak ellenére, hogy számos in vitro és in vivo modell bizonyítja, hogy a méz elpusztítja a problematikus sebfertőzéseket okozó kórokozókat, kevés megbízható klinikai adat áll rendelkezésre a Manuka mézről. Ennek több oka van, többek között a kettős vak, placebokontrollos vizsgálatok technikai nehézségei egy olyan jellegzetes anyaggal, mint a méz, az etikai megfontolások, a klinikai szakemberek érdektelensége, valamint a mézgyártó vállalatok költség-haszon szempontjai; e vállalatok a természetes termékekre és a vény nélkül kapható készítmények értékesítésére összpontosítanak, ahol a Manuka méz és a hozzá kapcsolódó kötszerek már most is prémium árat képviselnek. Ezek a körülmények változhatnak, ahogy az antibiotikum-rezisztencia fokozatosan csökkenti a jelenlegi kezelési lehetőségeket, és a mézben rejlő lehetőségeket kiemelő folyamatos kutatások felhívják rá az egészségügyi szakemberek figyelmét.
Hiányosságok és új lehetőségek a méz kutatásában
A terápiás mézzel kapcsolatos ismereteink terén a közelmúltban jelentős előrelépés történt, klinikai alkalmazása azonban továbbra is korlátozott, még akkor is, amikor a hagyományos antibiotikumok hatásossága kezd csökkenni. A méz összetettsége - amely vitathatatlanul éppen a legnagyobb erőssége a különféle kórokozók elpusztításában és a rezisztencia kialakulásának megelőzésében - megnehezíti a vizsgálatát, mivel számos, egymással együttműködő tényező valószínűleg befolyásolja a hatását. További mechanisztikus vizsgálatokat szorgalmazunk megfelelően regisztrált terápiás Manuka mézzel, különösen nem redukcionista rendszerbiológiai megközelítéseket alkalmazó kutatásokat, részletes kémiai és mikrobiológiai elemzésekkel kiegészítve, annak feltárására, hogyan hat a méz molekuláris, sejtszintű és populációs szinten, hogyan különbözhet ez a mikrobiális kórokozók egyes törzsei és fajai között, valamint hogyan reagál a gazdasejt (2. táblázat 2). Az ezekből a vizsgálatokból nyert információk ezt követően irányt mutathatnak a terápiában, és biztosíthatják a szükséges klinikai adatokat ahhoz, hogy a méz bekerüljön a mainstream gyógyászatba; többé ne csak alternatív terápiaként alkalmazzák, amikor már minden más kudarcot vallott.
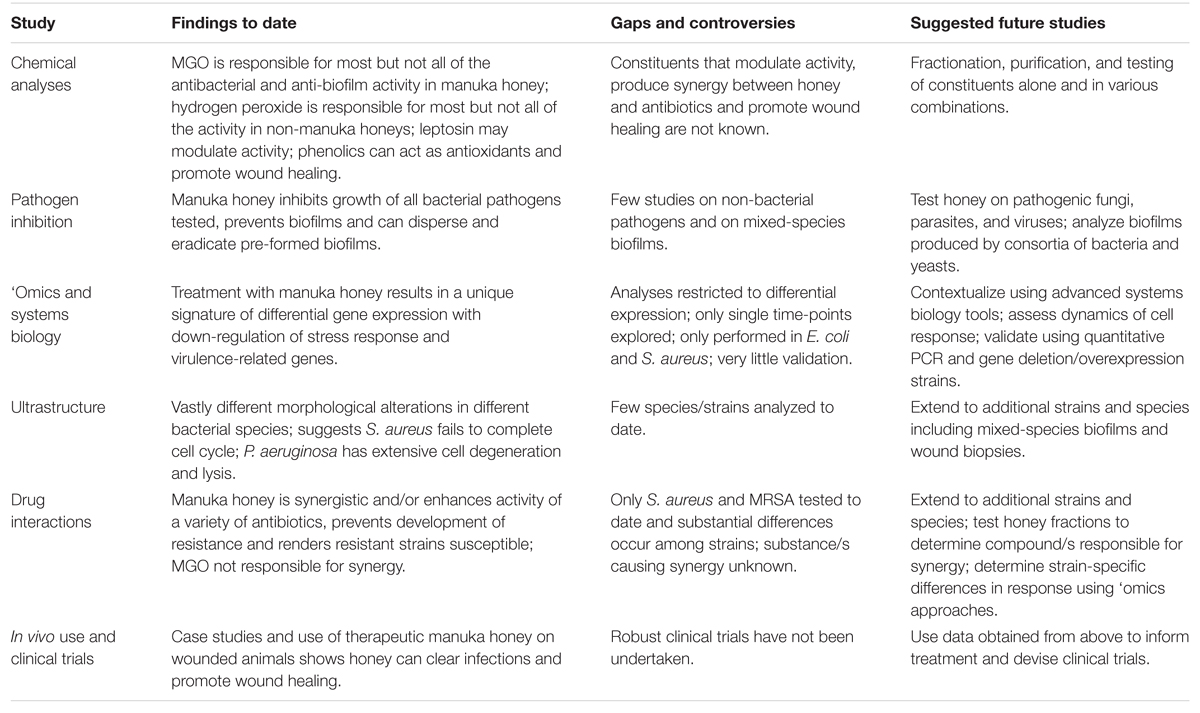
2. TÁBLÁZAT. A Manuka mézzel kapcsolatos vizsgálatok: eredmények, hiányosságok és jövőbeli kutatások.
Szerzői közreműködés
Ezt az áttekintést DC, SB, NNC, DB és PB írta, szakmailag pedig RS és EH bírálta el.
Finanszírozás
Az NNC fizetési támogatásban részesül a Rural Industries Research and Development Corporation – Honey Bee Program keretében (PRJ-009186 támogatás).
Összeférhetetlenségi nyilatkozat
DC, PB és EH a Comvita NZ Limitedtől és a Capilano Honey Limitedtől kap fizetési támogatást, valamint nem pénzbeli támogatást manukaméz formájában; RS a Comvita NZ Limited alkalmazottja, amely gyógyászati minőségű manukamézzel (Medihoney) kereskedik.
A többi szerző kijelenti, hogy a kutatást olyan kereskedelmi vagy pénzügyi kapcsolat hiányában végezték, amely potenciális összeférhetetlenségként lenne értelmezhető.
Rövidítések
ESBL, kiterjesztett spektrumú β-laktamáz; MBC, minimális baktericid koncentráció; MGO, metilglioxál; MIC, minimális gátló koncentráció; MRSA, meticillinrezisztens Staphylococcus aureus; MRSE, meticillinrezisztens Staphylococcus epidermis; NPA, nem peroxid alapú aktivitás; VRE, vankomicinrezisztens Enterococcus.
Hivatkozások
Adams, C. J., Boult, C. H., Deadman, B. J., Farr, J. M., Grainger, M. N. C., Manley-Harris, M. és mtsai. (2008). Az új-zélandi manukából (Leptospermum scoparium) származó méz bioaktív frakciójának HPLC-vel történő izolálása és jellemzése. Carbohydr. Res. 343, 651–659. doi: 10.1016/j.carres.2007.12.011
Adams, C. J., Manley-Harris, M. és Molan, P. C. (2009). A metilglioxál eredete új-zélandi manukából (Leptospermum scoparium) származó mézben. Carbohydr. Res. 344, 1050–1053. doi: 10.1016/j.carres.2009.03.020
Al Somal, N., Coley, K. E., Molan, P. C. és Hancock, B. M. (1994). A Helicobacter pylori érzékenysége a manukaméz antibakteriális aktivitására. J. R. Soc. Med. 87, 9–12.
Allen, K., Molan, P. és Reid, G. (1991). Néhány új-zélandi méz antibakteriális aktivitásának felmérése. J. Pharm. Pharmacol.43, 817–822. doi: 10.1111/j.2042-7158.1991.tb03186.x
Allen, K. L. és Molan, P. C. (1997). A tőgygyulladást okozó baktériumok érzékenysége a méz antibakteriális hatására. N. Z. J. Agric. Res. 40, 537–540. doi: 10.1080/00288233.1997.9513276
Anthimidou, E. és Mossialos, D. (2012). A görög és ciprusi mézek antibakteriális hatása a Staphylococcus aureus és a Pseudomonas aeruginosa ellen a Manuka-mézzel összehasonlítva. J. Med. Food 16, 42–47. doi: 10.1089/jmf.2012.0042
Balan, P., Mal, G., Das, S. és Singh, H. (2016). A kurkumin, a Manuka-méz és a tejsavófehérjék szinergikus és additív antimikrobiális hatása. J. Food Biochem. doi: 10.1111/jfbc.12249
Bassam, Z., Zohra, B. I. és Saada, A.-A. (1997). A méz hatása a Leishmania-parazitákra: in vitro vizsgálat. Trop. Doctor27, 36–38.
Biglari, B., Moghaddam, A., Santos, K., Blaser, G., Büchler, A., Jansen, G. és mtsai (2013). Többközpontú, prospektív megfigyeléses vizsgálat a mézzel (Medihoney) végzett professzionális sebkezelésről. Int. Wound J. 10, 252–259. doi: 10.1111/j.1742-481X.2012.00970.x
Bischofberger, A., Dart, C., Horadagoda, N., Perkins, N., Jeffcott, L., Little, C. és mtsai (2016). A Manuka-mézgél hatása a transzformáló növekedési faktor β1 és β3 koncentrációjára, a baktériumszámra és a szövettani morfológiára szennyezett, teljes vastagságú bőrsebekben a lovak végtagjainak distalis részén. Aust. Vet. J. 94, 27–34. doi: 10.1111/avj.12405
Blair, S., Cokcetin, N., Harry, E. és Carter, D. (2009). Az orvosi minőségű Leptospermumméz szokatlan antibakteriális aktivitása: antibakteriális spektrum, rezisztencia és transzkriptomanalízis. Eur. J. Clin. Microbiol. Infect. Dis. 28, 1199–1208. doi: 10.1007/s10096-009-0763-z
Blair, S. E. és Carter, D. A. (2005). A méz alkalmazásának lehetőségei sebek és fertőzések kezelésében. J. Austral. Infect. Control 10, 24–31.
Brady, N., Molan, P. és Harfoot, C. (1996). A bőrfonalas gombák érzékenysége a Manuka méz és más mézek antimikrobiális aktivitására. Pharm. Pharmacol. Commun. 2, 471–473.
Carnwath, R., Graham, E. M., Reynolds, K. és Pollock, P. J. (2014). A méz antimikrobiális aktivitása a gyakori lóseb-izolátumokból származó baktériumokkal szemben. Vet. J. 199, 110–114. doi: 10.1016/j.tvjl.2013.07.003
Chen, C., Campbell, L., Blair, S. E. és Carter, D. A. (2012). A hőkezelés hatása a méz antimikrobiális tulajdonságaira. Front. Microbiol. 3:265. doi: 10.3389/fmicb.2012.00265
Cooper, R., Jenkins, L., Henriques, A., Duggan, R. és Burton, N. (2010). A baktériumok rezisztenciájának hiánya az orvosi minőségű Manuka mézzel szemben. Eur. J. Clin. Microbiol. Infect. Dis. 29, 1237–1241. doi: 10.1007/s10096-010-0992-1
Cooper, R. A., Halas, E. és Molan, P. C. (2002a). A méz hatékonysága a fertőzött égési sebekből származó Pseudomonas aeruginosa törzsek növekedésének gátlásában. J. Burn Care Rehabil. 23, 366–370. doi: 10.1097/00004630-200211000-00002
Cooper, R. A. és Molan, P. C. (1999). A méz fertőtlenítőként való alkalmazása a Pseudomonas-fertőzés kezelésében. J. Wound Care 8, 161–164. doi: 10.12968/jowc.1999.8.4.25867
Cooper, R. A., Molan, P. C. és Harding, K. G. (1999). A méz antibakteriális hatása fertőzött sebekből származó Staphylococcus aureus törzsekkel szemben. J. R. Soc. Med. 92, 283–285.
Cooper, R. A., Molan, P. C. és Harding, K. G. (2002b). A sebekből izolált, klinikai jelentőségű Gram-pozitív kokkuszok méz iránti érzékenysége. J. Appl. Microbiol. 93, 857–863. doi: 10.1046/j.1365-2672.2002.01761.x
Cooper, R. A., Wigley, P. és Burton, N. F. (2000). A méz iránti érzékenysége több gyógyszerrel szemben rezisztens Burkholderia cepacia-törzsek esetében. Lett. Appl. Microbiol. 31, 20–24. doi: 10.1046/j.1472-765x.2000.00756.x
Dart, A., Bischofberger, A., Dart, C. és Jeffcott, L. (2015). A Manuka mézzel végzett, másodlagos sebgyógyulással kapcsolatos kutatások áttekintése lovaknál: jelenlegi ajánlások és jövőbeli alkalmazások. Equine Vet. Educ. 27, 658–664. doi: 10.1111/eve.12379
Estevinho, L., Pereira, A. P., Moreira, L., Dias, L. G. és Pereira, E. (2008). Az Északkelet-Portugáliából származó méz fenolosvegyület-kivonatainak antioxidáns és antimikrobiális hatásai. Food Chem. Toxicol. 46, 3774–3779. doi: 10.1016/j.fct.2008.09.062
French, V. M., Cooper, R. A. és Molan, P. C. (2005). A méz antibakteriális hatása koaguláz-negatív Staphylococcusokkal szemben. J. Antimicrobial Chemother. 56, 228–231. doi: 10.1093/jac/dki193
George, N. M. és Cutting, K. F. (2007). Antibakteriális méz (Medihoney): in vitro hatása az MRSA, a VRE és más multirezisztens Gram-negatív organizmusok klinikai izolátumaival szemben, beleértve a Pseudomonas aeruginosa baktériumot is. Wounds 19:231.
Halstead, F. D., Webber, M. A., Rauf, M., Burt, R., Dryden, M. és Oppenheim, B. A. (2016). Egy módosított méz, orvosi minőségű mézek és antimikrobiális sebkötözők in vitro hatása biofilmtermelő, klinikai bakteriális izolátumokkal szemben. J. Wound Care 25, 93–102. doi: 10.12968/jowc.2016.25.2.93
Hammond, E. N. és Donkor, E. S. (2013). A Manuka méz antibakteriális hatása a Clostridium difficile baktériumra. BMC Res. 6:188. doi: 10.1186/1756-0500-6-188
Henriques, A. F., Jenkins, R. E., Burton, N. F. és Cooper, R. A. (2010). A manuka méz sejten belüli hatásai a Staphylococcus aureus baktériumra. Eur. J. Clin. Microbiol. Infect. Dis. 29, 45–50. doi: 10.1007/s10096-009-0817-2
Henriques, A. F., Jenkins, R. E., Burton, N. F. és Cooper, R. A. (2011). A manuka méz hatása a Pseudomonas aeruginosa szerkezetére. Eur. J. Clin. Microbiol. Infect. Dis. 30, 167–171. doi: 10.1007/s10096-010-1065-1
Hudson, N. J., Dalrymple, B. P. és Reverter, A. (2012). A differenciális expresszión túl: az ok-okozati mutációk és effektormolekulák keresése. BMC Genomics 13:356. doi: 10.1186/1471-2164-13-356
Irish, J., Blair, S. és Carter, D. (2011). Az ausztrál flórából származó méz antibakteriális aktivitása. PLoS ONE 6:e18229. doi: 10.1371/journal.pone.0018229
Irish, J., Carter, D. A., Shokohi, T. és Blair, S. E. (2006). A méz gombaellenes hatást fejt ki a Candida fajokkal szemben. Med. Mycol. 44, 289–291. doi: 10.1080/13693780600931986
Jenkins, R., Burton, N. és Cooper, R. (2011). A Manuka méz hatása az univerzális A stresszfehérje expressziójára meticillinrezisztens Staphylococcus aureus esetén. Int. J. Antimicrob. Agents 37, 373–376. doi: 10.1016/j.ijantimicag.2010.11.036
Jenkins, R., Burton, N. és Cooper, R. (2013). A meticillinrezisztens Staphylococcus aureus (MRSA) proteomikai és genomikai elemzése, amelyet a Manuka méznek in vitro kitéve végeztek, a virulenciamarkerek csökkent szabályozását mutatta ki. J. Antimicrobial Chemother. 69, 603–615. doi: 10.1093/jac/dkt430
Jenkins, R. és Cooper, R. (2012). A sebkórokozók elleni antibiotikum-hatás javítása manukamézzel in vitro. PLoS ONE 7:e45600. doi: 10.1371/journal.pone.0045600
Jenkins, R., Roberts, A. és Brown, H. L. (2015a). A manukaméz antibakteriális hatásairól: mechanisztikus betekintés. Res. Rep. Biol. 6, 215–224. doi: 10.2147/RRB.S75754
Jenkins, R., Wootton, M., Howe, R. és Cooper, R. (2015b). A cisztás fibrózisban szenvedő betegektől nyert klinikai izolátumok manukamézzel szembeni érzékenységének bemutatása. Arch. Microbiol. 197, 597–601. doi: 10.1007/s00203-015-1091-6
Kalapos, M. P. (2008). A szabad gyökök és a metilglioxál tandemje. Chem. Biol. Interact. 171, 251–271. doi: 10.1016/j.cbi.2007.11.009
Kato, Y., Umeda, N., Maeda, A., Matsumoto, D., Kitamoto, N. és Kikuzaki, H. (2012). Egy új glikozid, a leptozin azonosítása a manukaméz kémiai markereként. J. Agric. Food Chem. 60, 3418–3423. doi: 10.1021/jf300068w
Kilty, S. J., Duval, M., Chan, F. T., Ferris, W. és Slinger, R. (2011). Metilglioxál: a manukaméz aktív összetevőjének baktérium-biofilmsejtek elleni in vitro hatása. Int. Forum Allergy Rhinol. 1, 348–350. doi: 10.1002/alr.20073
Kronda, J. M., Cooper, R. A. és Maddocks, S. E. (2013). A Manuka méz gátolja a sziderofor-termelést a Pseudomonas aeruginosa esetében. J. Appl. Microbiol. 115, 86–90. doi: 10.1111/jam.12222
Kwakman, P. H., te Velde, A. A., de Boer, L., Vandenbroucke-Grauls, C. M. és Zaat, S. A. (2011). Két jelentős gyógyhatású méz eltérő baktericid mechanizmusokkal rendelkezik. PLoS ONE 6:e17709. doi: 10.1371/journal.pone.0017709
Lee, J.-H., Park, J.-H., Kim, J.-A., Neupane, G. P., Cho, M. H., Lee, C.-S. és mtsai (2011). A méz alacsony koncentrációi csökkentik a biofilm képződését, a kvórumérzékelést és a virulenciát az Escherichia coli O157:H7 esetében. Biofouling 27, 1095–1104. doi: 10.1080/08927014.2011.633704
Lin, S. M., Molan, P. C. és Cursons, R. T. (2011). A gasztrointesztinális kórokozók kontrollált in vitro érzékenysége a Manuka méz antibakteriális hatására. Eur. J. Clin. Microbiol. Infect. Dis. 30, 569–574. doi: 10.1007/s10096-010-1121-x
Liu, M., Lu, J., Müller, P., Turnbull, L., Burke, C. M., Schlothauer, R. C. és mtsai (2014). Az Staphylococcus aureus antibiotikum-specifikus válaszai az antimikrobiális szerekkel kombinált Manuka mézzel végzett kezelésre. Front. Microbiol. 5:779. doi: 10.3389/fmicb.2014.00779
Lu, J., Carter, D. A., Turnbull, L., Rosendale, D., Hedderley, D., Stephens, J. és mtsai. (2013). Az új-zélandi kanuka-, manuka- és lóhere mézek hatása a baktériumok növekedési dinamikájára és sejtmorfológiájára a fajtól függően változik. PLoS ONE8:e55898. doi: 10.1371/journal.pone.0055898
Lu, J., Turnbull, L., Burke, C. M., Liu, M., Carter, D. A., Schlothauer, R. C. és mtsai. (2014). A különböző biofilmképző képességű Staphylococcus aureus törzsek által létrehozott biofilmeket a Manuka-típusú mézek képesek felszámolni. PeerJ 2:e326. doi: 10.7717/peerj.326
Maddocks, S. E., Jenkins, R. E., Rowlands, R. S., Purdy, K. J. és Cooper, R. A. (2013). A Manuka méz gátolja orvosilag jelentős seb baktériumainak megtapadását és invázióját in vitro. Fut. Microbiol. 8, 1523–1536. doi: 10.2217/fmb.13.126
Maddocks, S. E., Lopez, M. S., Rowlands, R. S. és Cooper, R. A. (2012). A Manuka méz gátolja a Streptococcus pyogenes biofilmjeinek kialakulását, és csökkenti két fibronektinkötő fehérje expresszióját. Microbiology 158, 781–790. doi: 10.1099/mic.0.053959-0
Majtan, J. (2014). Méz: immunmodulátor a sebgyógyulásban. Wound Repair Regenerat. 22, 187–192. doi: 10.1111/wrr.12117
Majtan, J., Bohova, J., Horniackova, M., Klaudiny, J. és Majtan, V. (2014a). A méz biofilmellenes hatása a sebfertőzések kórokozóival, a Proteus mirabilis-szel és az Enterobacter cloacae-val szemben. Phytother. Res. 28, 69–75. doi: 10.1002/ptr.4957
Majtan, J., Bohova, J., Prochazka, E. és Klaudiny, J. (2014b). A metil-glioxál a glükóz-oxidáz gátlásán keresztül befolyásolhatja a hidrogén-peroxid felhalmozódását a manukamézben. J. Med. Food 17, 290–293. doi: 10.1089/jmf.2012.0201
Majtan, J., Klaudiny, J., Bohova, J., Kohutova, L., Dzurova, M., Sediva, M. et al. (2012). A metil-glioxál által előidézett módosulások a manukaméz jelentős méhfehérje-összetevőiben: lehetséges terápiás következmények. Fitoterapia 83, 671–677. doi: 10.1016/j.fitote.2012.02.002
Majtan, J., Majtanova, L., Bohova, J. és Majtan, V. (2011). A mézharmatméz hatékony antibakteriális szer a rákos betegekből származó, több gyógyszerrel szemben rezisztens Stenotrophomonas maltophilia izolátumok felszámolására. Phytother. Res. 25, 584–587. doi: 10.1002/ptr.3304
Malone, L. A., Gatehouse, H. S. és Tregidga, E. L. (2001). Az idő, a hőmérséklet és a méz hatása a mézelő méh parazitájára, a Nosema apisra (Microsporidia: Nosematidae), az Apis melliferara (Hymenoptera: Apidae). J. Invertebrate Pathol. 77, 258–268. doi: 10.1006/jipa.2001.5028
Mavric, E., Wittmann, S., Barth, G. és Henle, T. (2008). A metilglioxál azonosítása és mennyiségi meghatározása a Manuka (Leptospermum scoparium) új-zélandi mézek domináns antibakteriális összetevőjeként. Mol. Nutrit. Food Res. 52, 483–489. doi: 10.1002/mnfr.200700282
Molan, P. M. (2008). Annak magyarázata, hogy a Manuka méz MGO-szintje miért nem mutatja az antibakteriális hatást. New Zealand Beekeeper 16, 11–13.
Mullai, V. és Menon, T. (2007). Különböző méztípusok baktériumölő hatása klinikai és környezeti eredetű Pseudomonas aeruginosa-izolátumokkal szemben. J. Alternat. Complement. Med. 13, 439–442. doi: 10.1089/acm.2007.6366
Müller, P., Alber, D. G., Turnbull, L., Schlothauer, R. C., Carter, D. A., Whitchurch, C. B. és mtsai (2013). A Medihoney és a rifampicin szinergizmusa a meticillinrezisztens Staphylococcus aureus (MRSA) ellen. PLoS ONE 8:e57679. doi: 10.1371/journal.pone.0057679
Mundo, M. A., Padilla-Zakour, O. I. és Worobo, R. W. (2004). Élelmiszer-eredetű kórokozók és élelmiszerrontó szervezetek növekedésének gátlása kiválasztott nyers mézekkel. Int. J. Food Microbiol. 97, 1–8. doi: 10.1016/j.ijfoodmicro.2004.03.025
Nilforoushzadeh, M. A., Jaffary, F., Moradi, S., Derakhshan, R. és Haftbaradaran, E. (2007). A helyileg alkalmazott méz és a glukantim intralézionális injekciójának hatása a bőrleishmaniasis kezelésében. BMC Complement Altern. Med. 7:1. doi: 10.1186/1472-6882-7-1
Norton, A. M., McKenzie, L. N., Brooks, P. R. és Pappalardo, L. J. (2015). A dihidroxi-aceton mennyiségi meghatározása ausztrál Leptospermum nektárban nagy teljesítményű folyadékkromatográfiával. J. Agric. Food Chem. 63, 6513–6517. doi: 10.1021/acs.jafc.5b01930
Okhiria, O., Henriques, A., Burton, N., Peters, A. és Cooper, R. (2009). A méz idő- és dózisfüggő módon módosítja a Pseudomonas aeruginosa biofilmjeit. J. ApiProduct. ApiMedical Sci. 1, 6–10. doi: 10.3896/IBRA.4.01.1.03
Osato, M. S., Reddy, S. G. és Graham, D. Y. (1999). A méz ozmotikus hatása a Helicobacter pylori. Dig. Dis. Sci. növekedésére és életképességére. 44, 462–464. doi: 10.1023/A:1026676517213
Packer, J. M., Irish, J., Herbert, B. R., Hill, C., Padula, M., Blair, S. E. és mtsai (2012). A manukaméz specifikus, nem peroxid alapú antibakteriális hatása a Staphylococcus aureus proteomjára. Int. J. Antimicrob. Agents 40, 43–50. doi: 10.1016/j.ijantimicag.2012.03.012
Roberts, A. E., Maddocks, S. E. és Cooper, R. A. (2012). A Manuka méz baktericid hatású a Pseudomonas aeruginosa ellen, és az oprF és algD gének differenciális expresszióját eredményezi. Microbiology 158, 3005–3013. doi: 10.1099/mic.0.062794-0
Roberts, A. E. L., Maddocks, S. E. és Cooper, R. A. (2015). A Manuka méz a flagellumhoz kapcsolódó gének elnyomásával csökkenti a Pseudomonas aeruginosa mozgékonyságát. J. Antimicrob. Chemother. 70, 716–725. doi: 10.1093/jac/dku448
Sajid, M. és Azim, M. K. (2012). A természetes méz fonálférgek elleni aktivitásának jellemzése. J. Agric. Food Chem. 60, 7428–7434. doi: 10.1021/jf301653n
Shahzad, A. és Cohrs, R. J. (2012). A méz in vitro vírusellenes aktivitása varicella-zoster vírus (VZV) ellen: transzlációs orvostudományi vizsgálat az övsömör lehetséges kezelésére. Transl. Biomed. 3:2.
Sherlock, O., Dolan, A., Athman, R., Power, A., Gethin, G., Cowman, S. és mtsai. (2010). A chilei Ulmo méz és a Manuka méz antimikrobiális aktivitásának összehasonlítása meticillinrezisztens Staphylococcus aureus, Escherichia coli és Pseudomonas aeruginosa ellen. BMC Complement Altern. Med. 10:47. doi: 10.1186/1472-6882-10-47
Silva-Rocha, R. és de Lorenzo, V. (2010). Zaj és robusztusság a prokarióta szabályozóhálózatokban. Annu. Rev. Microbiol. 64, 257–275. doi: 10.1146/annurev.micro.091208.073229
Smith, T., Hanft, J. R. és Legel, K. (2009). Helyileg alkalmazott Leptospermum-méz nehezen gyógyuló vénás lábszársebek esetén: előzetes esetsorozat. Adv. Skin Wound Care 22, 68–71. doi: 10.1097/01.ASW.0000345283.05532.9a
Soffer, A. (1976). Csivavák, laetril, kelátterápia és Boulderből (Colorado) származó méz [editorial]. Arch. Intern. Med.136, 865–866. doi: 10.1001/archinte.136.8.865
Sojka, M., Valachova, I., Bucekova, M. és Majtan, J. (2016). A méz és a méhekből származó defenzin-1 antibiofilmes hatékonysága több fajból álló seb-biofilm esetén. J. Med. Microbiol. doi: 10.1099/jmm.0.000227 [nyomtatás előtti elektronikus kiadás].
Stephens, J. M., Schlothauer, R. C., Morris, B. D., Yang, D., Fearnley, L., Greenwood, D. R. és mtsai (2010). Fenolos vegyületek és metilglioxál egyes új-zélandi manuka- és kanukamézekben. Food Chem. 120, 78–86. doi: 10.1016/j.foodchem.2009.09.074
Tan, H. T., Rahman, R. A., Gan, S. H., Halim, A. S., Hassan, S. A., Sulaiman, S. A. és mtsai (2009). A malajziai tualangméz antibakteriális tulajdonságai seb- és bélrendszeri mikroorganizmusokkal szemben, összehasonlítva a manukamézzel. BMC Complement Altern. Med. 9:34. doi: 10.1186/1472-6882-9-34
Watanabe, K., Rahmasari, R., Matsunaga, A., Haruyama, T. és Kobayashi, N. (2014). A méz influenzaellenes vírusellenes hatásai in vitro: a Manuka méz erőteljes, nagyfokú aktivitása. Arch. Med. Res. 45, 359–365. doi: 10.1016/j.arcmed.2014.05.006
Wilkinson, J. M. és Cavanagh, H. M. A. (2005). 13 méz antibakteriális hatása az Escherichia coli és a Pseudomonas aeruginosa ellen. J. Med. Food 8, 100–103. doi: 10.1089/jmf.2005.8.100
Williams, S., King, J., Revell, M., Manley-Harris, M., Balks, M., Janusch, F. és mtsai. (2014). A Manuka (Leptospermum scoparium) nektárjának dihidroxi-aceton-tartalmában tapasztalható regionális, éves és egyedi eltérések Új-Zélandon. J. Agric. Food Chem. 62, 10332–10340. doi: 10.1021/jf5045958
Willix, D. J., Molan, P. C. és Harfoot, C. G. (1992). A sebfertőzéseket okozó baktériumfajok érzékenységének összehasonlítása a Manuka méz és más mézek antibakteriális hatására. J. Appl. Bacteriol. 73, 388–394. doi: 10.1111/j.1365-2672.1992.tb04993.x
Windsor, S., Pappalardo, M., Brooks, P., Williams, S. és Manley-Harris, M. (2012). A dihidroxi-aceton és metil-glioxál ausztrál Leptospermum mézekre alkalmazott, kényelmes új elemzése. J. Pharmacogn. Phytother. 4, 6–11.
Forrás: Terápiás Manuka méz: már nem annyira alternatív - https://www.frontiersin.org/articles/10.3389/fmicb.2016.00569/full
Hagyjon megjegyzést