Miel de Manuka thérapeutique : plus si alternatif
La recherche sur le miel médicinal connaît actuellement une véritable renaissance. D’un remède traditionnel largement rejeté par la médecine conventionnelle comme étant « alternatif », le miel suscite désormais un intérêt croissant de la part des scientifiques, des professionnels de santé et du grand public pour ses usages thérapeutiques. Plusieurs facteurs expliquent cet intérêt : premièrement, l’augmentation de la résistance aux antibiotiques chez de nombreux agents pathogènes bactériens a stimulé la recherche et l’utilisation de nouveaux antibactériens ; deuxièmement, un nombre croissant d’études fiables et de rapports de cas ont démontré que certains miels sont très efficaces pour traiter les plaies ; troisièmement, le miel thérapeutique se vend à un prix élevé, et l’industrie du miel encourage activement les études qui lui permettront d’en tirer parti ; enfin, la nature très complexe et assez imprévisible du miel représente un défi intéressant pour les scientifiques en laboratoire. Dans cet article, nous passons en revue les recherches sur le miel de Manuka, depuis les études observationnelles sur ses effets antimicrobiens jusqu’aux travaux expérimentaux et mécanistiques actuels visant à faire entrer le miel dans la médecine conventionnelle. Nous présentons les lacunes actuelles et les controverses persistantes dans nos connaissances sur le mode d’action du miel, et proposons de nouvelles études qui pourraient faire du miel une alternative qui ne soit plus « alternative ».
Introduction
Le miel est utilisé comme médicament depuis toute l’histoire de l’humanité. L’un de ses usages thérapeutiques les plus courants et les plus anciens est le traitement des plaies, presque certainement en raison de ses propriétés antimicrobiennes. Avec l’avènement des antibiotiques très actifs dans les années 1960, le miel a été considéré comme une « substance sans valeur mais inoffensive » (Soffer, 1976). Toutefois, la crise actuelle et croissante de la résistance aux antibiotiques a ravivé l’intérêt pour l’utilisation du miel, à la fois comme agent efficace à part entière et comme piste thérapeutique pour mettre au point de nouvelles méthodes de traitement. Le miel provient généralement du nectar des fleurs et est produit par les abeilles, le plus souvent par l’abeille domestique européenne Apis mellifera, et constitue un mélange complexe de sucres, d’acides aminés, de composés phénoliques et d’autres substances. Les types de miel issus de différentes plantes à fleurs varient considérablement dans leur capacité à tuer les bactéries, ce qui a compliqué la littérature sur le miel et rendu parfois difficile la reproduction des résultats d’une étude à l’autre (Allen et al., 1991; Irish et al., 2011). La majorité des études récentes consacrées au mécanisme d’action du miel se sont concentrées sur le miel de Manuka actif, bien caractérisé et standardisé, produit par certaines espèces de Leptospermum originaires de Nouvelle-Zélande et d’Australie, et enregistré comme produit de soins des plaies auprès des autorités réglementaires médicales compétentes. Ainsi, sauf indication contraire, cette revue se concentrera sur le miel de Manuka.
Analyses chimiques du miel de Manuka actif
Le professeur Peter Molan, de l’université de Waikato en Nouvelle-Zélande, a été le premier à rendre compte de l’activité inhabituelle du miel de Manuka et a commencé à tester son action contre un large éventail d’espèces bactériennes différentes au milieu des années 1980. Cependant, alors qu’il était clair que même de faibles concentrations de miel de Manuka tuaient les agents pathogènes bactériens, l’ingrédient actif spécifique responsable de cette action est resté insaisissable pendant de nombreuses années. La forte teneur en sucre et le pH faible rendent le miel inhibiteur de la croissance microbienne, mais l’activité persiste lorsque ces facteurs sont dilués jusqu’à atteindre des niveaux négligeables. De nombreux types de miel produisent également du peroxyde d’hydrogène lorsque la glucose oxydase, issue de l’abeille domestique, réagit avec le glucose et l’eau. Cependant, dans le miel de Manuka, la production de peroxyde d’hydrogène est relativement faible et peut être neutralisée par la catalase, alors que l’activité persiste. La cause de cette activité résiduelle, appelée « activité non peroxydique » ou NPA, a finalement été révélée en 2008, lorsque deux laboratoires ont identifié indépendamment du méthylglyoxal (MGO) dans le miel de Manuka (Adams et al., 2008 ; Mavric et al., 2008). Le MGO résulte de la déshydratation spontanée de son précurseur, le dihydroxyacétone (DHA), un composé phytochimique naturellement présent dans le nectar des fleurs de Leptospermum scoparium, Leptospermum polygalifolium et de certaines espèces apparentées de Leptospermum originaires de Nouvelle-Zélande et d’Australie (Adams et al., 2009 ; Williams et al., 2014 ; Norton et al., 2015). Le MGO peut réagir de manière relativement non spécifique avec des macromolécules telles que l’ADN, l’ARN et les protéines (Adams et al., 2008 ; Mavric et al., 2008 ; Majtan et al., 2014b), et pourrait en théorie être toxique pour les cellules de mammifères (Kalapos, 2008). Cependant, rien n’indique que le miel de Manuka endommage les cellules de l’organisme lorsqu’il est consommé par voie orale ou utilisé comme pansement ; en effet, le miel semble stimuler la cicatrisation et réduire les cicatrices lorsqu’il est appliqué sur des plaies (Biglari et al., 2013 ; Majtan, 2014 ; Dart et al., 2015). La manière dont il exerce cette toxicité apparemment sélective sur les cellules bactériennes n’est pas connue.
Des niveaux élevés de MGO ou de peroxyde d’hydrogène produisent généralement le miel le plus actif. Toutefois, la corrélation n’est pas toujours parfaite, ce qui suggère que d’autres composants du miel peuvent moduler son activité (Molan, 2008; Kwakman et al., 2011; Chen et al., 2012; Lu et al., 2013). La défensine-1 d’abeille, un peptide antimicrobien dérivé de l’abeille, est responsable de l’activité du miel Revamil, un miel actif produit à partir d’une source non divulguée, mais elle semble être structurellement modifiée et inactive dans le miel de Manuka (Kwakman et al., 2011; Majtan et al., 2012). Le taux de leptosine, un glycoside trouvé exclusivement dans le miel de Leptospermum, est corrélé à la puissance et pourrait moduler l’activité antimicrobienne du miel de Manuka (Kato et al., 2012). De même, divers composés phénoliques dotés d’une activité antimicrobienne potentielle peuvent être présents, en particulier dans les miels plus foncés. Bien qu’ils soient présents à des niveaux peu susceptibles d’être inhibiteurs à eux seuls, ils peuvent agir en synergie les uns avec les autres ou avec d’autres composants du miel pour produire ou modifier l’activité (Estevinho et al., 2008; Stephens et al., 2010). Les composés phénoliques peuvent également agir comme antioxydants et pourraient être responsables des propriétés anti-inflammatoires et cicatrisantes du miel (Stephens et al., 2010). Il convient de noter que toutes les espèces de Leptospermum ne produisent pas un miel actif et que, même au sein de L. scoparium et de L. polygalifolium, les taux de MGO du miel peuvent varier d’environ 100 à >1200 ppm (Windsor et al., 2012). Une étude de l’activité des miels australiens a révélé que le miel issu de plantes de Leptospermum poussant autour de la frontière entre la Nouvelle-Galles du Sud et le Queensland était particulièrement actif, mais on ignore si cela est dû à la plante, au sol, au climat ou à d’autres facteurs (Irish et al., 2011).
Inhibition des agents pathogènes par le miel
Le miel a été testé in vitro sur un large éventail d’agents pathogènes, en particulier ceux qui peuvent coloniser la peau, les plaies et les muqueuses, où un traitement topique au miel est possible. À ce jour, les essais in vitro ont montré que le miel de Manuka peut inhiber efficacement tous les agents pathogènes bactériens problématiques testés (résumés dans le tableau 1). Il est particulièrement intéressant de constater que les isolats cliniques présentant des phénotypes de résistance à plusieurs médicaments (MDR) ne montrent aucune diminution de leur sensibilité au miel, ce qui indique un large spectre d’action différent de celui de tout antimicrobien connu (Willix et al., 1992 ; Blair et Carter, 2005 ; George et Cutting, 2007 ; Tan et al., 2009). En outre, les tentatives visant à générer des souches résistantes au miel en laboratoire n’ont pas abouti, et aucun cas d’isolat clinique ayant acquis une résistance au miel n’a été signalé (Blair et al., 2009 ; Cooper et al., 2010).
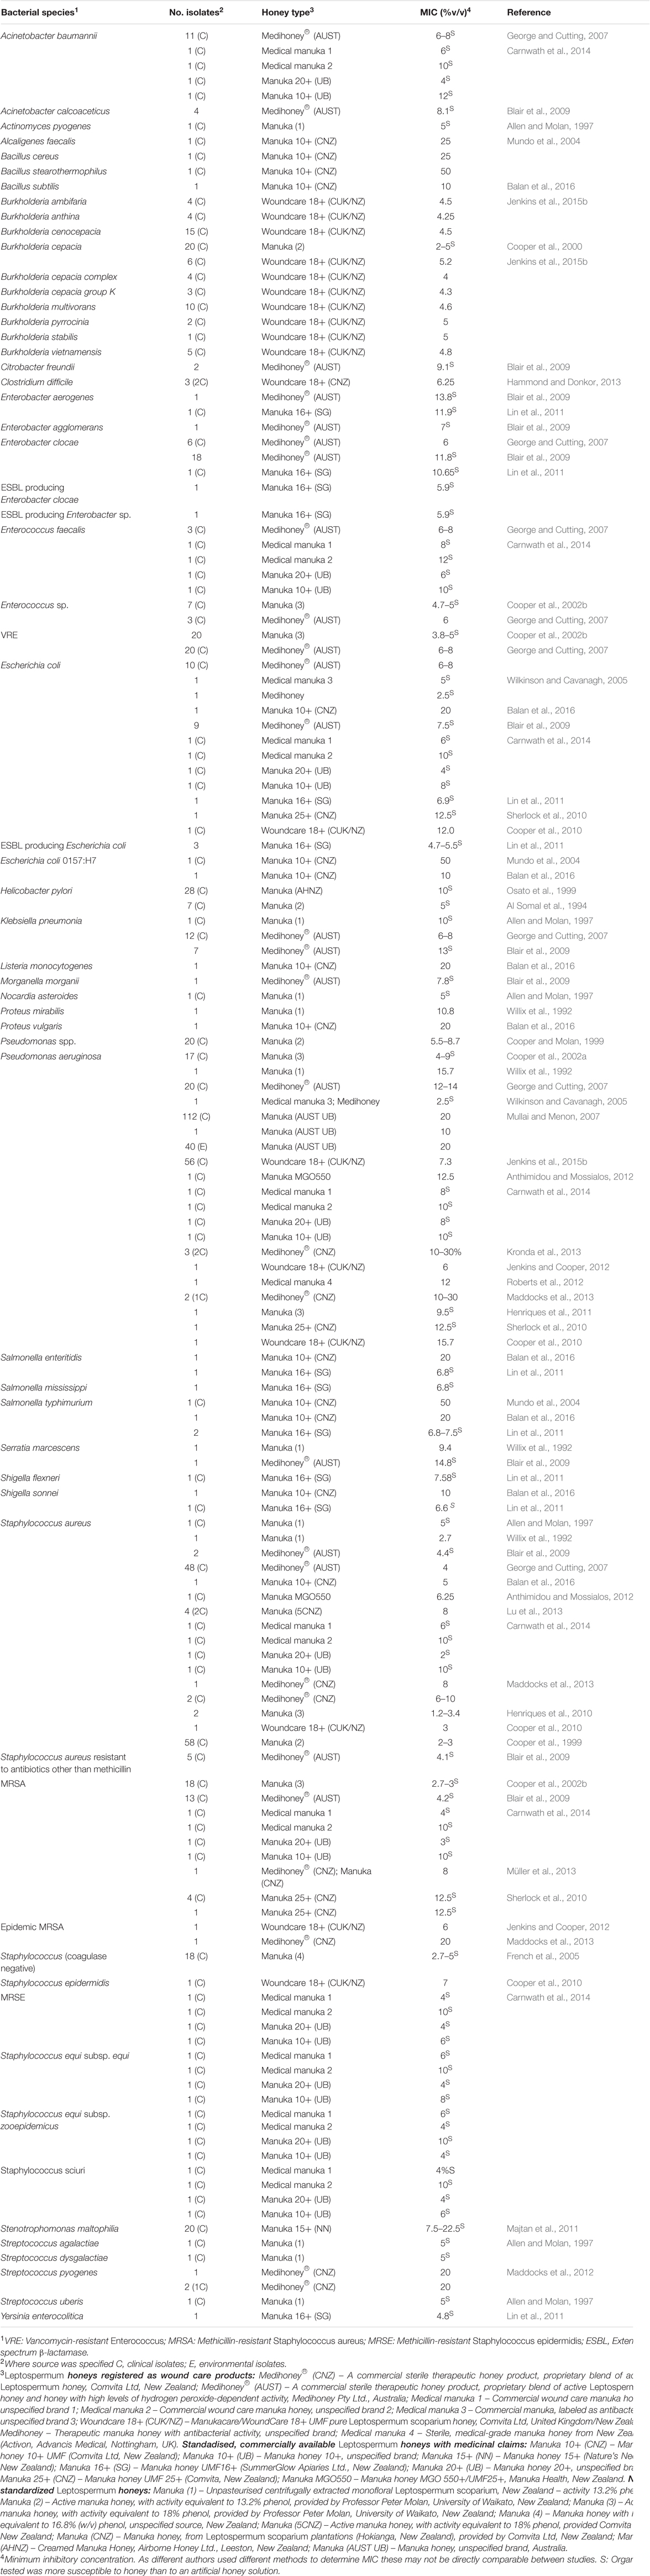
TABLEAU 1. Espèces bactériennes se révélant sensibles au miel de Manuka thérapeutique.
En plus d’inhiber les cellules planctoniques, le miel peut disperser et tuer les bactéries vivant dans des biofilms. Les biofilms sont des communautés de cellules généralement enfermées dans une matrice extracellulaire produite par elles-mêmes et qui adhèrent à des surfaces, notamment les plaies, les dents, les surfaces muqueuses et les dispositifs implantés. Les microbes présents dans les biofilms sont protégés contre les agents antimicrobiens et peuvent provoquer des infections persistantes qui ne se résorbent pas. Le miel de Manuka désagrège les agrégats cellulaires (Maddocks et al., 2012 ; Roberts et al., 2012) et empêche la formation de biofilms par un large éventail d’agents pathogènes problématiques, notamment les espèces de Streptococcus et de Staphylococcus, Pseudomonas aeruginosa, Escherichia coli, Proteus mirabilis, Enterobacter cloacae, Acinetobacter baumannii et Klebsiella pneumonia (Maddocks et al., 2012, 2013 ; Lu et al., 2014 ; Majtan et al., 2014a ; Halstead et al., 2016). Il est important de noter que le miel peut également désagréger les biofilms établis et tuer les cellules qui y résident, bien qu’une concentration plus élevée soit nécessaire que pour les cellules planctoniques (Okhiria et al., 2009 ; Maddocks et al., 2013 ; Lu et al., 2014 ; Majtan et al., 2014a). Très récemment, du miel de Manuka a été testé sur un biofilm multiespèces contenant Staphylococcus aureus, Streptococcus agalactiae, Pseudomonas aeruginosa et Enterococcus faecalis et il a été constaté qu’il réduisait la viabilité de toutes les espèces, à l’exception d’E. faecalis, qui n’a pas pu être éradiqué (Sojka et al., 2016). Cela a des implications cliniques évidentes pour l’utilisation du miel sur les plaies contenant des biofilms, et comprendre comment le biofilm permet à E. faecalis de survivre alors qu’il est normalement tué par le miel constitue un domaine d’étude futur important et intéressant. Le MGO semble être en grande partie, mais pas entièrement, responsable de l’inhibition des biofilms par le miel de Manuka, ce qui souligne une fois de plus l’importance des composants supplémentaires qui modulent son activité (Kilty et al., 2011 ; Lu et al., 2014).
Le spectre d’activité du miel contre les agents pathogènes non bactériens n’est pas encore bien établi. De récentes études portant sur l’effet antiviral du miel de Manuka suggèrent qu’il pourrait être utilisé dans le traitement du virus varicelle-zona (à l’origine de la varicelle et du zona) (Shahzad and Cohrs, 2012) et de la grippe (Watanabe et al., 2014). Les agents pathogènes fongiques de la peau, notamment Candida albicans et les espèces de dermatophytes, sont nettement moins sensibles au miel de Manuka que les bactéries, mais leur croissance est inhibée par les miels produisant de grandes quantités de peroxyde d’hydrogène (Brady et al., 1996 ; Irish et al., 2006). Il a été constaté que les miels de Manuka et autres réduisent la viabilité des spores du microsporidien Nosema apis, un important agent pathogène des abeilles, mais que le miel ne pouvait pas guérir l’infection des abeilles une fois celle-ci déclarée (Malone et al., 2001). Très peu d’études ont porté sur l’utilisation du miel contre les parasites protozoaires ou helminthiques, et celles-ci n’ont pas utilisé de miel dont l’activité était bien caractérisée, ce qui rend difficile l’évaluation de la portée de leurs résultats (Bassam et al., 1997 ; Nilforoushzadeh et al., 2007 ; Sajid and Azim, 2012).
Intégrer le miel à la médecine conventionnelle : de récentes études expérimentales et mécanistiques éclairent le mode d’action du miel
Le miel de Manuka actif est largement disponible comme agent thérapeutique et aliment fonctionnel, et la plupart des consommateurs l’acceptent comme un produit holistique, quelque peu mystérieux. Cependant, le manque de compréhension de la manière dont le miel tue les bactéries et favorise la cicatrisation limite son acceptation par la médecine conventionnelle, où il est encore considéré comme « alternatif » ou « complémentaire ». La grande majorité des études consacrées au miel à ce jour ont été descriptives. Toutefois, des études récentes cherchent à comprendre comment le miel agit et utilisent des approches mécanistiques pour déterminer son action aux niveaux cellulaire et moléculaire.
Études ultrastructurales de cellules et de communautés bactériennes traitées au miel
Le miel peut modifier profondément la taille et la forme des cellules bactériennes, bien que l’ampleur de ces modifications varie selon les espèces bactériennes. En microscopie électronique en transmission (MET), les cultures de S. aureus traitées avec du miel de Manuka présentaient davantage de cellules dont les septa étaient achevés que celles traitées avec du miel artificiel, ce qui suggère que les cellules étaient entrées dans la phase de division du cycle cellulaire sans parvenir à l’achever, bien qu’elles aient semblé normales extérieurement en microscopie électronique à balayage (MEB) (Henriques et al., 2010). Plus récemment, l’imagerie en contraste de phase réalisée après un traitement avec une dose sublétale de miel de Manuka a montré que les cellules de S. aureus et de Bacillus subtilis étaient significativement plus petites et plus susceptibles de présenter un ADN condensé que celles qui se développaient sans miel (Lu et al., 2013). Il est difficile de comparer directement ces études, car elles utilisaient des quantités de miel et des durées de traitement différentes, mais, dans l’ensemble, les résultats suggèrent un découplage de la croissance et de la division cellulaire, phénomène souvent observé en réponse à des stress nutritionnels et environnementaux (Silva-Rocha and de Lorenzo, 2010).
Il a été rapporté qu’un traitement au miel provoquait, dans les cultures des espèces à Gram négatif E. coli et P. aeruginosa, la présence de cellules anormalement plus courtes et plus longues (Lu et al., 2013). Fait intéressant, bien que P. aeruginosa semble moins sensible à l’inhibition par le miel que d’autres espèces, d’importantes modifications cellulaires ont été observées par MET et MEB, notamment des sillons et des boursouflures (protrusions des membranes plasmiques cellulaires) à la surface des cellules, ainsi qu’une quantité considérable de débris extracellulaires indiquant une lyse cellulaire (Henriques et al., 2011). Ces observations ont été confirmées dans une étude ultérieure utilisant la coloration fluorescente BacLight vivant-mort et la microscopie confocale, qui a toutefois également montré qu’un nombre relativement élevé de cellules vivantes subsistait. Ces études utilisaient du miel à 20 % (p/v), une concentration supérieure à la CMB pour leur souche de P. aeruginosa, et une inhibition ainsi qu’une mortalité importantes étaient donc attendues. Cependant, la microscopie à force atomique (AFM), réalisée avec des concentrations inférieures au seuil bactéricide, a tout de même révélé d’importantes déformations cellulaires et des boursouflures dans les cellules traitées avec des concentrations correspondant à la CMI (12 %) et à la moitié de la CMI (6 %), ainsi qu’une lyse cellulaire importante (Roberts et al., 2012). Cette dégénérescence apparente de la cellule de P. aeruginosa a été étayée par une analyse quantitative par PCR, qui a montré, dans les cellules traitées au miel, une diminution d’un facteur 10 de l’expression de oprF, qui code une porine de la membrane externe importante pour la stabilité structurelle (Jenkins et al., 2015a).
Les analyses « omiques » évaluent la réponse cellulaire globale à l’inhibition par le miel
La capacité à évaluer les effets produits par la cellule entière a révolutionné l’étude des interactions entre les médicaments et les agents pathogènes et présente un intérêt particulier pour les produits naturels complexes comme le miel, dont les effets sur de multiples processus sont probables. Les études par microréseaux et les études protéomiques de bactéries exposées au miel ont suggéré une induction de processus liés au stress et une inhibition de la synthèse des protéines (Blair et al., 2009; Jenkins et al., 2011; Packer et al., 2012). Bien que cela soit globalement assez caractéristique d’une réponse à des agents inhibiteurs, le miel a produit une « signature » unique d’expression différentielle, comprenant de nombreuses protéines aux fonctions hypothétiques ou inconnues, ce qui suggère un mode d’action inédit. Les gènes ou protéines spécifiques dont l’expression était réduite dans les analyses « omiques » de S. aureus et d’E. coli O157/H7 sont liés à la virulence, à la détection du quorum et à la formation de biofilms (Lee et al., 2011; Jenkins et al., 2013), tandis que chez P. aeruginosa, on a observé une diminution de l’expression des protéines impliquées dans la formation des flagelles (Roberts et al., 2015). Ces phénotypes sont essentiels pour que les agents pathogènes s’établissent et provoquent une infection invasive et indiquent qu’en plus d’inhiber la croissance, le miel peut réduire le potentiel pathogène des bactéries infectantes.
Bien qu’elles soient encore relativement limitées en nombre et en portée, les analyses « omiques » réalisées à ce jour suggèrent une réponse cellulaire complexe au miel, avec des variations considérables selon les espèces bactériennes. Des approches avancées de biologie des systèmes permettant de contextualiser les données, ainsi que des études de validation utilisant la PCR quantitative et des souches présentant des délétions géniques, sont désormais nécessaires pour démêler cette complexité. Elles pourraient révéler de nouvelles approches thérapeutiques visant à inhiber la croissance bactérienne (Hudson et al., 2012).
Interactions entre le miel et les antibiotiques conventionnels
Outre son utilisation en tant qu’agent unique, le miel peut être utilisé pour compléter un traitement par des antibiotiques conventionnels. Cette approche peut présenter un intérêt particulier lorsqu’elle est associée à des agents systémiques pouvant être acheminés vers le lit de la plaie par la circulation sanguine, tandis que le miel est appliqué par voie topique. Les traitements combinés peuvent également réduire la dose thérapeutique des agents antimicrobiens et prévenir l’apparition de résistances. Dans certains cas, ils peuvent entraîner une synergie médicamenteuse, l’activité combinée étant alors supérieure à la somme des activités individuelles de chacun des médicaments associés.
Des études in vitro combinant du miel de Manuka approuvé à des fins thérapeutiques avec des agents antibiotiques ont mis en évidence un effet synergique avec l’oxacilline, la tétracycline, l’imipénème et la mupirocine contre la croissance d’une souche de SARM (Jenkins and Cooper, 2012). En outre, la présence d’une concentration subinhibitrice de miel en association avec l’oxacilline a rétabli la sensibilité de la souche de SARM à l’oxacilline. Les auteurs ont constaté une diminution de l’expression de mecR1, qui code une protéine de liaison à la pénicilline spécifique du SARM (PBP2A), et ont avancé qu’il pourrait s’agir d’un mécanisme de la synergie avec le miel. Une forte activité synergique entre le miel de Manuka et la rifampicine contre plusieurs souches de S. aureus, notamment des isolats cliniques et des souches de SARM, a également été observée, et la présence de miel a empêché l’apparition d’une résistance à la rifampicine in vitro (Müller et al., 2013). Cette observation revêt une importance clinique, car la rifampicine pénètre bien dans les tissus et les abcès et est couramment utilisée pour traiter les infections staphylococciques superficielles, mais elle induit rapidement une résistance et doit donc être utilisée en association avec un autre agent. Cette étude a également montré que la synergie n’était pas due au MGO, car un miel synthétique additionné de MGO n’était pas synergique avec la rifampicine.
Comprendre comment le miel agit sur l’action d’antimicrobiens dont les modes d’action sont bien caractérisés pourrait également nous aider à mieux comprendre comment le miel agit sur les agents pathogènes bactériens. Liu et al. (2014)ont étendu l’analyse de la synergie à d’autres antibiotiques et à différentes souches de S. aureus et de SARM. Ils ont suggéré qu’une sensibilité accrue à la clindamycine et à la gentamicine pourrait résulter de l’effet combiné de la diminution de la synthèse protéique induite par le miel et de l’inhibition des ribosomes par les antibiotiques, tandis que la synergie avec les antibiotiques β-lactamines pourrait être due à un stress oxydatif accru causé par les deux partenaires. Comme les souches de S. aureus et de SARM étaient également sensibles à l’association oxacilline-miel, il semblait peu probable que la synergie soit due à une diminution de l’expression de PBP2A. Cependant, dans un isolat clinique de SARM, la présence de miel n’a entraîné aucune augmentation de la sensibilité à la clindamycine ou à la gentamicine, ce qui est notable, car il s’agit du premier cas rapporté d’une différence de réponse au miel entre le SARM et S. aureus. L’étude de cette différence spécifique à la souche au moyen d’analyses transcriptomiques ou protéomiques constituerait une piste intéressante pour de futures recherches (Liu et al., 2014).
Preuves d’efficacité issues d’études animales, d’études de cas et d’essais cliniques
Les entreprises qui produisent et commercialisent du miel de Manuka promeuvent des normes éthiques élevées et déconseillent l'utilisation de modèles animaux pour étudier les infections et la cicatrisation des plaies. Le miel de Manuka a toutefois été utilisé pour traiter des animaux présentant des plaies chirurgicales ou accidentelles, en particulier des chevaux, avec des résultats positifs (Dart et al., 2015 ; Bischofberger et al., 2016). Des rapports de cas faisant état de l'utilisation du miel pour des plaies et ulcères ne cicatrisant pas ont signalé une amélioration significative, avec résolution de l'infection lorsque les antibiotiques conventionnels avaient échoué (Regulski, 2008 ; Smith et al., 2009). Toutefois, malgré cela et les données issues de nombreux modèles in vitro et in vivo montrant que le miel élimine les agents pathogènes problématiques des plaies, les données cliniques robustes sur le miel de Manuka restent rares. Plusieurs raisons l'expliquent, notamment les difficultés techniques liées à la réalisation d'un essai en double aveugle contrôlé par placebo sur une substance particulière comme le miel, les considérations éthiques, le manque d'intérêt des praticiens cliniciens et le rapport coût-bénéfice pour les entreprises apicoles, dont l'activité est axée sur les produits naturels et les ventes sans ordonnance, dans lesquelles le miel de Manuka et les pansements associés sont déjà vendus à un prix élevé. Cette situation pourrait évoluer à mesure que la résistance aux antibiotiques réduit les options thérapeutiques actuelles et que les recherches en cours mettant en évidence le potentiel du miel attirent l'attention des professionnels de santé.
Lacunes et nouvelles perspectives dans l'étude du miel
De grands progrès ont récemment été réalisés dans notre compréhension du miel thérapeutique, mais son utilisation en médecine clinique reste limitée, même lorsque les antibiotiques conventionnels commencent à échouer. La complexité du miel, qui constitue probablement sa principale force pour éliminer divers agents pathogènes et prévenir l'apparition de résistances, complique son étude, car de nombreux facteurs agissant conjointement sont susceptibles d'influencer son activité. Nous préconisons de poursuivre les études mécanistiques menées avec du miel de Manuka thérapeutique dûment enregistré, notamment des études utilisant des approches de biologie des systèmes non réductionnistes, ainsi que des analyses chimiques et microbiologiques détaillées visant à élucider les mécanismes d'action du miel aux niveaux moléculaire, cellulaire et populationnel, les différences possibles entre les différentes souches et espèces d'agents pathogènes microbiens, ainsi que la réponse de la cellule hôte (Tableau 2). Les informations obtenues grâce à ces études pourront ensuite orienter le traitement et fournir les données cliniques nécessaires pour intégrer le miel à la médecine conventionnelle, plutôt que de le laisser comme traitement alternatif utilisé uniquement lorsque toutes les autres options ont échoué.
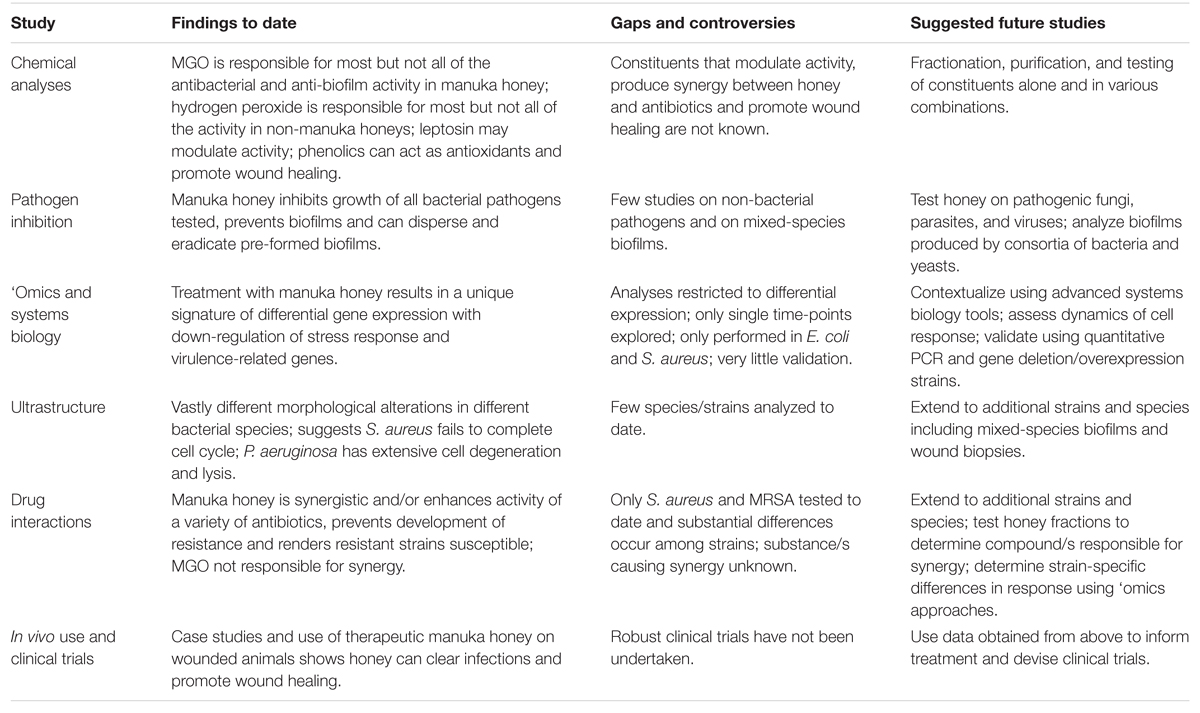
TABLEAU 2. Études sur le miel de Manuka : résultats, lacunes et études futures.
Contributions des auteurs
Cette revue a été rédigée par DC, SB, NNC, DB et PB, puis examinée de manière critique par RS et EH.
Financement
NNC reçoit un soutien salarial de la Rural Industries Research and Development Corporation – Honey Bee Program (subvention PRJ-009186).
Déclaration de conflit d’intérêts
DC, PB et EH déclarent avoir reçu de Comvita NZ Limited et Capilano Honey Limited un financement et un soutien non financier sous forme de miel de Manuka ; RS est employé par Comvita NZ Limited, qui commercialise du miel de Manuka de qualité médicale (Medihoney).
Les autres auteurs déclarent que la recherche a été menée en l’absence de toute relation commerciale ou financière pouvant être interprétée comme un conflit d’intérêts potentiel.
Abréviation
ESBL, bêta-lactamase à spectre étendu ; MBC, concentration bactéricide minimale ; MGO, méthylglyoxal ; MIC, concentration inhibitrice minimale ; MRSA, Staphylococcus aureus résistant à la méticilline ; MRSE, Staphylococcus epidermis résistant à la méticilline ; NPA, activité non peroxydique ; VRE, Enterococcus résistant à la vancomycine.
Références
Adams, C. J., Boult, C. H., Deadman, B. J., Farr, J. M., Grainger, M. N. C., Manley-Harris, M. et al. (2008). Isolement par HPLC et caractérisation de la fraction bioactive du miel de Manuka néo-zélandais (Leptospermum scoparium). Carbohydr. Res. 343, 651–659. doi: 10.1016/j.carres.2007.12.011
Adams, C. J., Manley-Harris, M. et Molan, P. C. (2009). Origine du méthylglyoxal dans le miel de Manuka néo-zélandais (Leptospermum scoparium). Carbohydr. Res. 344, 1050–1053. doi: 10.1016/j.carres.2009.03.020
Al Somal, N., Coley, K. E., Molan, P. C. et Hancock, B. M. (1994). Sensibilité d’Helicobacter pylori à l’activité antibactérienne du miel de Manuka. J. R. Soc. Med. 87, 9–12.
Allen, K., Molan, P. et Reid, G. (1991). Étude de l’activité antibactérienne de certains miels néo-zélandais. J. Pharm. Pharmacol.43, 817–822. doi: 10.1111/j.2042-7158.1991.tb03186.x
Allen, K. L. et Molan, P. C. (1997). Sensibilité des bactéries responsables de la mammite à l’activité antibactérienne du miel. N. Z. J. Agric. Res. 40, 537–540. doi: 10.1080/00288233.1997.9513276
Anthimidou, E. et Mossialos, D. (2012). Activité antibactérienne des miels grecs et chypriotes contre Staphylococcus aureus et Pseudomonas aeruginosa comparée à celle du miel de Manuka. J. Med. Food 16, 42–47. doi: 10.1089/jmf.2012.0042
Balan, P., Mal, G., Das, S. et Singh, H. (2016). Activités antimicrobiennes synergiques et additives de la curcumine, du miel de Manuka et des protéines de lactosérum. J. Food Biochem. doi: 10.1111/jfbc.12249
Bassam, Z., Zohra, B. I., et Saada, A.-A. (1997). Effets du miel sur les parasites Leishmania : une étude in vitro. Trop. Doctor27, 36–38.
Biglari, B., Moghaddam, A., Santos, K., Blaser, G., Büchler, A., Jansen, G., et al. (2013). Étude observationnelle prospective multicentrique sur les soins professionnels des plaies utilisant du miel (Medihoney). Int. Wound J. 10, 252–259. doi: 10.1111/j.1742-481X.2012.00970.x
Bischofberger, A., Dart, C., Horadagoda, N., Perkins, N., Jeffcott, L., Little, C., et al. (2016). Effet du gel de miel de Manuka sur les concentrations de facteurs de croissance transformants β1 et β3, la numération bactérienne et l’histomorphologie de plaies cutanées contaminées d’épaisseur totale sur les membres distaux équins. Aust. Vet. J. 94, 27–34. doi: 10.1111/avj.12405
Blair, S., Cokcetin, N., Harry, E. et Carter, D. (2009). Activité antibactérienne inhabituelle du miel de Leptospermum de qualité médicale : spectre antibactérien, résistance et analyse du transcriptome. Eur. J. Clin. Microbiol. Infect. Dis. 28, 1199–1208. doi: 10.1007/s10096-009-0763-z
Blair, S. E. et Carter, D. A. (2005). Potentiel du miel dans la prise en charge des plaies et des infections. J. Austral. Infect. Control 10, 24–31.
Brady, N., Molan, P. et Harfoot, C. (1996). Sensibilité des dermatophytes à l’activité antimicrobienne du miel de Manuka et d’autres miels. Pharm. Pharmacol. Commun. 2, 471–473.
Carnwath, R., Graham, E. M., Reynolds, K. et Pollock, P. J. (2014). Activité antimicrobienne du miel contre les isolats bactériens courants de plaies équines. Vet. J. 199, 110–114. doi: 10.1016/j.tvjl.2013.07.003
Chen, C., Campbell, L., Blair, S. E. et Carter, D. A. (2012). Effet du traitement thermique sur les propriétés antimicrobiennes du miel. Front. Microbiol. 3:265. doi: 10.3389/fmicb.2012.00265
Cooper, R., Jenkins, L., Henriques, A., Duggan, R. et Burton, N. (2010). Absence de résistance bactérienne au miel de Manuka de qualité médicale. Eur. J. Clin. Microbiol. Infect. Dis. 29, 1237–1241. doi: 10.1007/s10096-010-0992-1
Cooper, R. A., Halas, E. et Molan, P. C. (2002a). L’efficacité du miel pour inhiber des souches de Pseudomonas aeruginosa provenant de brûlures infectées. J. Burn Care Rehabil. 23, 366–370. doi: 10.1097/00004630-200211000-00002
Cooper, R. A. et Molan, P. C. (1999). Utilisation du miel comme antiseptique dans la prise en charge d’une infection à Pseudomonas. J. Wound Care 8, 161–164. doi: 10.12968/jowc.1999.8.4.25867
Cooper, R. A., Molan, P. C. et Harding, K. G. (1999). Activité antibactérienne du miel contre des souches de Staphylococcus aureusprovenant de plaies infectées. J. R. Soc. Med. 92, 283–285.
Cooper, R. A., Molan, P. C. et Harding, K. G. (2002b). Sensibilité au miel des cocci à Gram positif d’importance clinique isolés de plaies. J. Appl. Microbiol. 93, 857–863. doi: 10.1046/j.1365-2672.2002.01761.x
Cooper, R. A., Wigley, P. et Burton, N. F. (2000). Sensibilité des souches multirésistantes de Burkholderia cepacia au miel. Lett. Appl. Microbiol. 31, 20–24. doi: 10.1046/j.1472-765x.2000.00756.x
Dart, A., Bischofberger, A., Dart, C. et Jeffcott, L. (2015). Revue des recherches sur la cicatrisation des plaies équines par seconde intention à l’aide de miel de Manuka : recommandations actuelles et applications futures. Equine Vet. Educ. 27, 658–664. doi: 10.1111/eve.12379
Estevinho, L., Pereira, A. P., Moreira, L., Dias, L. G. et Pereira, E. (2008). Effets antioxydants et antimicrobiens d’extraits de composés phénoliques du miel du nord-est du Portugal. Food Chem. Toxicol. 46, 3774–3779. doi: 10.1016/j.fct.2008.09.062
French, V. M., Cooper, R. A. et Molan, P. C. (2005). Activité antibactérienne du miel contre les staphylocoques à coagulase négative. J. Antimicrobial Chemother. 56, 228–231. doi: 10.1093/jac/dki193
George, N. M. et Cutting, K. F. (2007). Miel antibactérien (Medihoney) : activité in vitro contre des isolats cliniques de SARM, d’ERV et d’autres organismes à Gram négatif multirésistants, notamment Pseudomonas aeruginosa. Wounds 19:231.
Halstead, F. D., Webber, M. A., Rauf, M., Burt, R., Dryden, M. et Oppenheim, B. A. (2016). Activité in vitro d’un miel conçu par ingénierie, de miels de qualité médicale et de pansements antimicrobiens pour plaies contre des isolats bactériens cliniques producteurs de biofilm. J. Wound Care 25, 93–102. doi: 10.12968/jowc.2016.25.2.93
Hammond, E. N. et Donkor, E. S. (2013). Effet antibactérien du miel de Manuka sur Clostridium difficile. BMC Res. 6:188. doi: 10.1186/1756-0500-6-188
Henriques, A. F., Jenkins, R. E., Burton, N. F. et Cooper, R. A. (2010). Effets intracellulaires du miel de Manuka sur Staphylococcus aureus. Eur. J. Clin. Microbiol. Infect. Dis. 29, 45–50. doi: 10.1007/s10096-009-0817-2
Henriques, A. F., Jenkins, R. E., Burton, N. F. et Cooper, R. A. (2011). Effet du miel de Manuka sur la structure de Pseudomonas aeruginosa. Eur. J. Clin. Microbiol. Infect. Dis. 30, 167–171. doi: 10.1007/s10096-010-1065-1
Hudson, N. J., Dalrymple, B. P. et Reverter, A. (2012). Au-delà de l’expression différentielle : la quête des mutations causales et des molécules effectrices. BMC Genomics 13:356. doi: 10.1186/1471-2164-13-356
Irish, J., Blair, S. et Carter, D. (2011). L’activité antibactérienne du miel issu de la flore australienne. PLoS ONE 6:e18229. doi: 10.1371/journal.pone.0018229
Irish, J., Carter, D. A., Shokohi, T. et Blair, S. E. (2006). Le miel possède un effet antifongique contre les espèces de Candida. Med. Mycol.44, 289–291. doi: 10.1080/13693780600931986
Jenkins, R., Burton, N. et Cooper, R. (2011). Effet du miel de Manuka sur l’expression de la protéine A de stress universel chez Staphylococcus aureus résistant à la méthicilline. Int. J. Antimicrob. Agents 37, 373–376. doi: 10.1016/j.ijantimicag.2010.11.036
Jenkins, R., Burton, N. et Cooper, R. (2013). L’analyse protéomique et génomique de Staphylococcus aureus résistant à la méthicilline (SARM), exposé au miel de Manuka in vitro, a démontré une sous-régulation des marqueurs de virulence. J. Antimicrob. Chemother. 69, 603–615. doi: 10.1093/jac/dkt430
Jenkins, R. et Cooper, R. (2012). Amélioration de l’activité antibiotique contre les agents pathogènes des plaies avec du miel de Manuka in vitro. PLoS ONE 7:e45600. doi: 10.1371/journal.pone.0045600
Jenkins, R., Roberts, A. et Brown, H. L. (2015a). Sur les effets antibactériens du miel de Manuka : éclairages mécanistiques. Res. Rep. Biol. 6, 215–224. doi: 10.2147/RRB.S75754
Jenkins, R., Wootton, M., Howe, R. et Cooper, R. (2015b). Démonstration de la sensibilité au miel de Manuka d’isolats cliniques obtenus chez des patients atteints de mucoviscidose. Arch. Microbiol. 197, 597–601. doi: 10.1007/s00203-015-1091-6
Kalapos, M. P. (2008). Le tandem des radicaux libres et du méthylglyoxal. Chem. Biol. Interact. 171, 251–271. doi: 10.1016/j.cbi.2007.11.009
Kato, Y., Umeda, N., Maeda, A., Matsumoto, D., Kitamoto, N. et Kikuzaki, H. (2012). Identification d’un nouveau glycoside, la leptosine, comme marqueur chimique du miel de Manuka. J. Agric. Food Chem. 60, 3418–3423. doi: 10.1021/jf300068w
Kilty, S. J., Duval, M., Chan, F. T., Ferris, W. et Slinger, R. (2011). Méthylglyoxal : (agent actif du miel de Manuka) activité in vitro contre les biofilms bactériens. Int. Forum Allergy Rhinol. 1, 348–350. doi: 10.1002/alr.20073
Kronda, J. M., Cooper, R. A. et Maddocks, S. E. (2013). Le miel de Manuka inhibe la production de sidérophores chez Pseudomonas aeruginosa. J. Appl. Microbiol. 115, 86–90. doi: 10.1111/jam.12222
Kwakman, P. H., te Velde, A. A., de Boer, L., Vandenbroucke-Grauls, C. M. et Zaat, S. A. (2011). Deux grands miels médicinaux ont des mécanismes d’activité bactéricide différents. PLoS ONE 6:e17709. doi: 10.1371/journal.pone.0017709
Lee, J.-H., Park, J.-H., Kim, J.-A., Neupane, G. P., Cho, M. H., Lee, C.-S., et al. (2011). De faibles concentrations de miel réduisent la formation de biofilms, la détection du quorum et la virulence chez Escherichia coli O157: H7. Biofouling 27, 1095–1104. doi: 10.1080/08927014.2011.633704
Lin, S. M., Molan, P. C. et Cursons, R. T. (2011). Sensibilité contrôlée in vitro des agents pathogènes gastro-intestinaux à l’effet antibactérien du miel de Manuka. Eur. J. Clin. Microbiol. Infect. Dis. 30, 569–574. doi: 10.1007/s10096-010-1121-x
Liu, M., Lu, J., Müller, P., Turnbull, L., Burke, C. M., Schlothauer, R. C., et al. (2014). Différences spécifiques aux antibiotiques dans la réponse de Staphylococcus aureus au traitement par des antimicrobiens associés au miel de Manuka. Front. Microbiol. 5:779. doi: 10.3389/fmicb.2014.00779
Lu, J., Carter, D. A., Turnbull, L., Rosendale, D., Hedderley, D., Stephens, J., et al. (2013). L’effet des miels de kanuka, de Manuka et de trèfle de Nouvelle-Zélande sur la dynamique de croissance bactérienne et la morphologie cellulaire varie selon l’espèce. PLoS ONE8:e55898. doi: 10.1371/journal.pone.0055898
Lu, J., Turnbull, L., Burke, C. M., Liu, M., Carter, D. A., Schlothauer, R. C., et al. (2014). Les miels de type Manuka peuvent éradiquer les biofilms produits par des souches de Staphylococcus aureus présentant différentes capacités de formation de biofilms. PeerJ 2:e326. doi: 10.7717/peerj.326
Maddocks, S. E., Jenkins, R. E., Rowlands, R. S., Purdy, K. J., et Cooper, R. A. (2013). Le miel de Manuka inhibe l’adhésion et l’invasion de bactéries des plaies médicalement importantes in vitro. Fut. Microbiol. 8, 1523–1536. doi: 10.2217/fmb.13.126
Maddocks, S. E., Lopez, M. S., Rowlands, R. S., et Cooper, R. A. (2012). Le miel de Manuka inhibe le développement des biofilms de Streptococcus pyogenes et entraîne une réduction de l’expression de deux protéines de liaison à la fibronectine. Microbiology 158, 781–790. doi: 10.1099/mic.0.053959-0
Majtan, J. (2014). Le miel : un immunomodulateur dans la cicatrisation des plaies. Wound Repair Regenerat. 22, 187–192. doi: 10.1111/wrr.12117
Majtan, J., Bohova, J., Horniackova, M., Klaudiny, J. et Majtan, V. (2014a). Effets antibiofilm du miel contre les agents pathogènes des plaies Proteus mirabilis et Enterobacter cloacae. Phytother. Res. 28, 69–75. doi: 10.1002/ptr.4957
Majtan, J., Bohova, J., Prochazka, E. et Klaudiny, J. (2014b). Le méthylglyoxal pourrait affecter l’accumulation de peroxyde d’hydrogène dans le miel de Manuka en inhibant la glucose oxydase. J. Med. Food 17, 290–293. doi: 10.1089/jmf.2012.0201
Majtan, J., Klaudiny, J., Bohova, J., Kohutova, L., Dzurova, M., Sediva, M. et al. (2012). Modifications induites par le méthylglyoxal de composants protéiques importants de l’abeille domestique dans le miel de Manuka : implications thérapeutiques possibles. Fitoterapia 83, 671–677. doi: 10.1016/j.fitote.2012.02.002
Majtan, J., Majtanova, L., Bohova, J. et Majtan, V. (2011). Le miel de miellat comme puissant agent antibactérien pour l’éradication d’isolats multirésistants de Stenotrophomonas maltophilia chez des patients atteints de cancer. Phytother. Res. 25, 584–587. doi: 10.1002/ptr.3304
Malone, L. A., Gatehouse, H. S. et Tregidga, E. L. (2001). Effets du temps, de la température et du miel sur Nosema apis (Microsporidia : Nosematidae), un parasite de l’abeille domestique, Apis mellifera (Hymenoptera : Apidae). J. Invertebrate Pathol. 77, 258–268. doi: 10.1006/jipa.2001.5028
Mavric, E., Wittmann, S., Barth, G. et Henle, T. (2008). Identification et quantification du méthylglyoxal en tant que constituant antibactérien dominant des miels de Manuka (Leptospermum scoparium) de Nouvelle-Zélande. Mol. Nutrit. Food Res. 52, 483–489. doi: 10.1002/mnfr.200700282
Molan, P. M. (2008). Explication de la raison pour laquelle le taux de MGO dans le miel de Manuka ne reflète pas l’activité antibactérienne. New Zealand Beekeeper 16, 11–13.
Mullai, V. et Menon, T. (2007). Activité bactéricide de différents types de miel contre des isolats cliniques et environnementaux de Pseudomonas aeruginosa. J. Alternat. Complement. Med. 13, 439–442. doi: 10.1089/acm.2007.6366
Müller, P., Alber, D. G., Turnbull, L., Schlothauer, R. C., Carter, D. A., Whitchurch, C. B., et al. (2013). Synergie entre le Medihoney et la rifampicine contre Staphylococcus aureus résistant à la méthicilline (MRSA). PLoS ONE 8:e57679. doi: 10.1371/journal.pone.0057679
Mundo, M. A., Padilla-Zakour, O. I. et Worobo, R. W. (2004). Inhibition de la croissance des agents pathogènes d’origine alimentaire et des organismes responsables de l’altération des aliments par certains miels bruts. Int. J. Food Microbiol. 97, 1–8. doi: 10.1016/j.ijfoodmicro.2004.03.025
Nilforoushzadeh, M. A., Jaffary, F., Moradi, S., Derakhshan, R. et Haftbaradaran, E. (2007). Effet de l’application topique de miel associée à l’injection intralésionnelle de glucantime dans le traitement de la leishmaniose cutanée. BMC Complement Altern. Med. 7:1. doi: 10.1186/1472-6882-7-1
Norton, A. M., McKenzie, L. N., Brooks, P. R. et Pappalardo, L. J. (2015). Quantification du dihydroxyacétone dans le nectar australien de Leptospermum par chromatographie liquide à haute performance. J. Agric. Food Chem. 63, 6513–6517. doi: 10.1021/acs.jafc.5b01930
Okhiria, O., Henriques, A., Burton, N., Peters, A. et Cooper, R. (2009). Le miel module les biofilms de Pseudomonas aeruginosa de manière dépendante du temps et de la dose. J. ApiProduct. ApiMedical Sci. 1, 6–10. doi: 10.3896/IBRA.4.01.1.03
Osato, M. S., Reddy, S. G. et Graham, D. Y. (1999). Effet osmotique du miel sur la croissance et la viabilité de Helicobacter pylori. Dig. Dis. Sci. 44, 462–464. doi: 10.1023/A:1026676517213
Packer, J. M., Irish, J., Herbert, B. R., Hill, C., Padula, M., Blair, S. E., et al. (2012). Effet antibactérien spécifique non peroxydique du miel de Manuka sur le protéome de Staphylococcus aureus. Int. J. Antimicrob. Agents 40, 43–50. doi: 10.1016/j.ijantimicag.2012.03.012
Regulski, M. (2008). Un nouveau pansement pour le soin des plaies dues aux ulcérations chroniques de la jambe. Podiatry Manag. 27, 235–246.
Roberts, A. E., Maddocks, S. E. et Cooper, R. A. (2012). Le miel de Manuka est bactéricide contre Pseudomonas aeruginosa et entraîne une expression différentielle de oprF et algD. Microbiology 158, 3005–3013. doi: 10.1099/mic.0.062794-0
Roberts, A. E. L., Maddocks, S. E. et Cooper, R. A. (2015). Le miel de Manuka réduit la motilité de Pseudomonas aeruginosa en supprimant les gènes associés aux flagelles. J. Antimicrob. Chemother. 70, 716–725. doi: 10.1093/jac/dku448
Sajid, M. et Azim, M. K. (2012). Caractérisation de l’activité nématicide du miel naturel. J. Agric. Food Chem. 60, 7428–7434. doi: 10.1021/jf301653n
Shahzad, A. et Cohrs, R. J. (2012). Activité antivirale in vitro du miel contre le virus varicelle-zona (VZV) : étude de médecine translationnelle sur un traitement potentiel du zona. Transl. Biomed. 3:2.
Sherlock, O., Dolan, A., Athman, R., Power, A., Gethin, G., Cowman, S., et al. (2010). Comparaison de l’activité antimicrobienne du miel d’Ulmo du Chili et du miel de Manuka contre Staphylococcus aureus résistant à la méthicilline, Escherichia coli et Pseudomonas aeruginosa. BMC Complement Altern. Med. 10:47. doi: 10.1186/1472-6882-10-47
Silva-Rocha, R. et de Lorenzo, V. (2010). Bruit et robustesse des réseaux de régulation procaryotes. Annu. Rev. Microbiol. 64, 257–275. doi: 10.1146/annurev.micro.091208.073229
Smith, T., Hanft, J. R., et Legel, K. (2009). Miel topique de Leptospermum dans les plaies veineuses récalcitrantes de la jambe : série de cas préliminaire. Adv. Skin Wound Care 22, 68–71. doi: 10.1097/01.ASW.0000345283.05532.9a
Soffer, A. (1976). Chihuahuas et laetrile, thérapie par chélation, et miel de Boulder, Colorado [editorial]. Arch. Intern. Med.136, 865–866. doi: 10.1001/archinte.136.8.865
Sojka, M., Valachova, I., Bucekova, M., et Majtan, J. (2016). Efficacité antibiofilm du miel et de la défensine-1 d’origine apicole sur un biofilm de plaie multiespèces. J. Med. Microbiol. doi: 10.1099/jmm.0.000227 [Publication électronique avant impression].
Stephens, J. M., Schlothauer, R. C., Morris, B. D., Yang, D., Fearnley, L., Greenwood, D. R., et al. (2010). Composés phénoliques et méthylglyoxal dans certains miels de Manuka et de Kanuka de Nouvelle-Zélande. Food Chem. 120, 78–86. doi: 10.1016/j.foodchem.2009.09.074
Tan, H. T., Rahman, R. A., Gan, S. H., Halim, A. S., Hassan, S. A., Sulaiman, S. A., et al. (2009). Propriétés antibactériennes du miel tualang malaisien contre les microorganismes des plaies et entériques, en comparaison avec le miel Manuka. BMC Complement Altern. Med. 9:34. doi: 10.1186/1472-6882-9-34
Watanabe, K., Rahmasari, R., Matsunaga, A., Haruyama, T. et Kobayashi, N. (2014). Effets antiviraux du miel contre la grippe in vitro : forte activité du miel de Manuka. Arch. Med. Res. 45, 359–365. doi : 10.1016/j.arcmed.2014.05.006
Wilkinson, J. M. et Cavanagh, H. M. A. (2005). Activité antibactérienne de 13 miels contre Escherichia coli et Pseudomonas aeruginosa. J. Med. Food 8, 100–103. doi : 10.1089/jmf.2005.8.100
Williams, S., King, J., Revell, M., Manley-Harris, M., Balks, M., Janusch, F. et al. (2014). Variations régionales, annuelles et individuelles de la teneur en dihydroxyacétone du nectar du Manuka (Leptospermum scoparium) en Nouvelle-Zélande. J. Agric. Food Chem. 62, 10332–10340. doi : 10.1021/jf5045958
Willix, D. J., Molan, P. C. et Harfoot, C. G. (1992). Comparaison de la sensibilité des espèces bactériennes infectant les plaies à l’activité antibactérienne du miel de Manuka et d’autres miels. J. Appl. Bacteriol. 73, 388–394. doi : 10.1111/j.1365-2672.1992.tb04993.x
Windsor, S., Pappalardo, M., Brooks, P., Williams, S. et Manley-Harris, M. (2012). Une nouvelle méthode pratique d’analyse de la dihydroxyacétone et du méthylglyoxal appliquée aux miels australiens de Leptospermum. J. Pharmacogn. Phytother. 4, 6–11.
Source : Miel de Manuka thérapeutique : plus si alternatif - https://www.frontiersin.org/articles/10.3389/fmicb.2016.00569/full
Laissez un commentaire